


Обучение „Биотехнология § Микробиология“
„Системна биология и „ОМИКС“ технологии“
Ниво за напреднали
Напредъкът в „ОМИКС“ технологиите позволиха и създаването на медицински практики на молекулярно ниво. Бързо намаляващите разходи за високопроизводително секвениране и други паралелни технологии, като мас спектрометрия, доведоха до масовото им използване в различни клинични изследвания и клиничната практика.
Съдържание


„ОМИКС“ технологиите за подобряване качеството на живот
„ОМИКС“ технологиите и молекулярната медицина
Напредъкът в „ОМИКС“ технологиите позволиха и създаването на медицински практики на молекулярно ниво. Бързо намаляващите разходи за високопроизводително секвениране и други паралелни технологии, като мас спектрометрия, доведоха до масовото им използване в различни клинични изследвания и клиничната практика. Секвенирането на екзома и генома вече се прилага в диагностиката, особено на редки заболявания, както и при избора на лечение на ракови заболявания и при създаването на прогнозни модели при здрави индивиди. Усилията на многобройните изследователи и компании са фокусирани върху използването на различни геномни, експресионни и други „ОМИКС“ данни, включително човешкия микробиом, като биомаркери за заболяване. Тези техники също се прилагат и при идентифициране на рискови локуси за заболяване, дефиниране на точна патофизиология на заболяването, както и извършване на изследвания в областта на безопасността и здравето на работното място.
В идеалния случай различни технологии биха били комбинирани както за подпомагане на диагностицирането на заболяването, така и за създаване на холистична картина на човешките фенотипове и болести. Въпреки това, прилагането на мулти-“ОМИКС“ данни въвежда нови предизвикателства в областта на информатиката и интерпретацията. Какви са начините, по които интегративните „ОМИКС“ технологии могат да повлияят на медицината, така че да подпомагат здравните практики, както и процесите за диагностициране и лечение на болести? Всъщност, за подобряване на резултатите от лечението и намаляване на нежеланите събития, които имат значение както за медицинското лице, така и за пациента, едно от перспективните решения е да се разработи персонализирана медицина – персонализирано медицинско лечение, създадено така, че да отговаря на индивидуалните характеристики, нужди и уникален молекулен и генетичен профил на пациента (Фиг. 1).

Фиг. 1. Персонализирана медицина през целия живот
„ОМИКС“ технологиите в диагностиката
Пренатална диагностика
Близо 10% от детските заболявания и 20% от смъртните случаи на бебета се дължат на болести с Менделово унаследяване. Генетичните дефекти могат да бъдат сериозна заплаха за здравето на бебето. За да се преодолее този проблем, последните разработки в областта на „ОМИКС“ технологиите се прилагат в живота на човек още преди раждането. Пренаталният скрининг стана широко разпространен в много страни за изследване не само на аномалии на плода, но и на възможните рискове от заболявания или анормални състояния след раждането. Когато съществува генетична предразположеност, като кистозна фиброза или мускулна дистрофия, консултацията с медицински специалист или компания за генетична диагностика става от голямо значение. Последните иновации в молекулярната и клетъчната биология позволиха прилагането на различни генетични изследвания за фетуса. Доскоро се използваха различни инвазивни технологии като амниоцентеза и проби от хорионни въси. Въпреки че процедурите са подобрени, все още съществува риск от спонтанен аборт и сериозни странични ефекти. Един от иновативните опити за избягване на страничните ефекти на конвенционалните инвазивни технологии е да се изолират и анализират фетални ядрени клетки от кръвта на майката.
За съжаление, броят на феталните клетки, които могат да бъдат изолирани, е около 3-5 клетки на 30 мл кръв на майката. Огромният скок в областта на неинвазивното пренатално тестване е направен след напредъка на „ОМИКС“ технологиите и тяхното комбиниране с различни експериментални подходи. Използването на техниката за амплификация на ДНК, комбинирана със секвениране от следващо поколение (NGS), позволява директното откриване на феталната ДНК в кръвта на майката. Понастоящем такъв подход се използва за определяне на пола и Rh кръвна група и за анализ на хромозомни анеуплоидии. Безклетъчната фетална ДНК обикновено се освобождава в кръвта на майката по време на процеса на апоптоза на плацентарните клетки. Фрагментираната безклетъчна фетална ДНК е дълга ∼200 bp и има полуживот от ∼16 минути и може да бъде открита в майчината плазма от ранна бременност (5-7 седмици). В допълнение към феталната ДНК, феталните РНКи могат да се използват и за неинвазивно пренатално изследване. Например, фетална тризомия 21 може да бъде диагностицирана чрез проверка на алелното съотношение на PLAC4 иРНК, произведена от хромозома 21 в плацентата. Ако бебето получи хетерогенни алели от родителите, неравномерно алелно съотношение (2 : 1) предполага тризомия.
Интегрирането на геномни, транскриптомни, протеомни, метаболомни и епигенетични данни на плода ще помогне за напредъка на пренаталната генетична диагностика. По този начин всяко генетично заболяване може да бъде идентифицирано в началото на бременността чрез прилагане на неинвазивни подходи. Въпреки това възникват някои опасения по отношение на сериозни етични проблеми, когато се използват усъвършенствани геномни технологии. Ето защо следва да се обмислят по-нататъшни проучвания за въздействието на новите технологии върху обществото, като възможна дискриминация въз основа на генетична информация, неопределени вредни ефекти на нанотехнологиите върху хората и природата и нарушения на авторските права, дължащи се на развитието на информационните технологии (вж. ОР8).
Технологията „Лаборатория върху чип“ в диагностиката
Скоро след разработването на микро-електромеханичните системи (MEMС), бяха установени и различни възможности за потенциалното приложение на тези миниатюрни платформи. През последните няколко десетилетия интересът към биологичните или биомедицинските MEMС (БиоMEMС) е нараснал значително и той е намерил широко приложение в различни области на науката за живота, включително диагностика, терапия, разработка на лекарства, биосензори и тъканно инженерство. Тези интегрирани системи са известни още като „лаборатория върху чип“ (ЛОЧ) или „микросистеми за цялостен анализ“ (μTAS) и осигуряват солиден подход за миниатюризация, интеграция, автоматизация и паралелизиране на химически процеси.
Устройствата „лаборатория върху чип“ интегрират множество лабораторни функции на един чип (от няколко квадратни милиметра до няколко квадратни сантиметра с размер). Тези платформи предоставят сложни химични и/или биологични анализи, които са по-евтини, по-бързи, лесно контролирани, с по-добри показатели и в много малък мащаб в сравнение с конвенционалните лабораторни тестове. Те са в състояние да обработват изключително малки обеми течности до по-малко от няколко пиколитра (няколко микрокапчици кръв, плазма, слюнка, сълза, урина или пот). Този факт е много важен в много клинични проучвания, където обикновено са налични много малки обеми от проби от пациенти. Освен това автоматизацията с елиминиране на параметрите на човешката намеса може да повиши надеждността на анализа.
ЛОЧ е използван в различни приложения, като: извличане и пречистване на ДНК, PCR, qPCR, молекулярна детекция, електрофоретичен анализ и др.
ЛОЧ за извличане и пречистване на ДНК: Често за диагностични анализи нуклеиновата киселина трябва да бъде пречистена от клетките. Процесът на извличане на ДНК обикновено включва две стъпки: клетъчен лизис чрез разрушаване на клетъчната и ядрена мембрана и пречистване на ДНК от мембранни липиди, протеини и РНК. Клетъчен лизис на ЛОЧ устройства може да се постигне чрез няколко вида методи за лизис: химичен, термичен, ултразвуков, електрически, механичен или някакъв друг вид. Тези добре известни методи за пречистване на ДНК чрез колони за екстракция, използващи адсорбцията на ДНК върху силициев диоксид при определени буферни условия, също са адаптивни към микрофлуидни техники.
ЛОЧ устройства за PCR, qPCR и молекулярна детекция: След извличане на ДНК, най-честият анализ е PCR. Значението на PCR в геномния анализ доведе до разработването на множество ЛОЧ устройства. Миниатюризирането на обема и високото съотношение повърхност към обем определя бърз термичен трансфер и по-точен PCR. Обикновено, след провеждането на PCR анализа се извършва допълнителна обработка на получените данни и откриване на размера на ампликоните, което найючесто се извършва чрез електрофореза. Всъщност, ДНК електрофорезата беше един от първите молекулярни процеси, които бяха интегрирани в чип. С тази миниатюризация се намалява още повече общото време на процеса и консумацията на реагенти.

Фиг. 2. „Лаборатория върху чип“ устройство
qPCR е друга техника, която е модифицирана за ЛОЧ устройства. Използвайки ултра-бърз контролер на налягане и флуоресцентен четец, беше разработена ултра-бърза qPCR микрофлуидна система за молекулярно откриване на заболявания като антракс и ебола. Ефективността на откриване е идентична с комерсиалните системи и резултатите са постижими за по-малко от 8 минути, което е 7-15 пъти по-бързо от традиционно използваните. Друга обещаваща област е цифровата микрофлуидика, която се занимава с емулсии и капчици в ЛОЧ устройства. Изключително малко количество ДНК може да бъде уловено в капчици, а границите на откриване могат да бъдат подобрени до установяване на едно копие ДНК с qPCR в рамките на капчица течност.
Геномно приложение: Поради многобройните проекти за секвениране, като например проекта за човешкия геном, областта на геномиката привлече огромно внимание през последните години. Техниките за секвениране на ДНК от следващо поколение, които в момента са в процес на разработка, включват секвениране чрез хибридизация (SBH), секвениране на нанопори и секвениране чрез синтез (SBS), последният от които включва много различни стратегии, зависими от ДНК полимеразата. Използването на ЛОЧ подход позволява драстично намаляване на разходите и продължителността на високопроизводителното секвениране.
При изследване на експресията на комплексни ДНК проби е необходима интеграцията на множество биосензори във ДНК микрочиповете. Най-съществените характеристики на тези ЛОЧ са миниатюризация, скорост и прецизност. Тази технология предлага огромни възможности за бърз мултиплексен анализ на проби от нуклеинови киселини, включително диагностициране на генетични заболявания, откриване на инфекциозни агенти, измерване на диференциална генна експресия, скрининг на лекарства или криминалистичен анализ.
Биохимични приложения: ЛОЧ стратегията е приложима и при провеждане на ензимни и имунологични анализи на едно-канално микрофлуидно устройство. Типичен пример е едновременното измерване на глюкоза и инсулин. Ключът за ефективното осъществяване на такъв мониторинг на глюкоза/инсулин е интегрирането на съответните процедури за предварителна обработка/почистване на пробата, които са от съществено значение за анализа на цялата кръв. Този иновативен подход на ЛОЧ може да бъде приложим за включване на други анализи и допълнителни стъпки за обработка на проби, както е препоръчително при създаването на миниатюрни клинични инструменти.
Протеомика: Протеомиката е едно от големите научни предизвикателства в съвременната епоха, след геномиката. ЛОЧ устройствата са полезни за създаване на усъвършенствани техники за отговор на сложни аналитични проблеми, като профилиране на протеома. Те могат да бъдат приложени в четири ключови области на протеомиката: химическа обработка, предварителна концентрация и пречистване на пробата, химическо разделяне и интерфейси с мас-спектрометрия. ЛОЧ като миниатюрно устройство може да се използва за разделяне и откриване на протеини. Този процес се характеризира с по-малка консумация на реагент, лесна работа и много бърз анализ. Друго предимство е, че данните от ЛОЧ устройствата могат лесно да бъдат сравнени с тези, получени с помощта на 2D-PAGE. За да се определят количествено протеините, е разработено ЛОЧ – мас-спетрометрично устройство. Някои автори описват ЛОЧ устройства, които се използват за директна инфузия в мас-спектрометъра, включително разделяне с капилярна електрофореза (СЕ), разграждане на пробата върху чип и последващ мас-спектрометричен анализ. Изследователите използват електроспрей йонизираща мас-спектрометрия и се фокусират върху дизайна на интерфейса между ЛОЧ и мас-спектрометъра.
Биосензори: За откриване на целеви аналити са разработени и ЛОЧ биосензори. Такива устройства свързват елемент за биологично разпознаване с физически преобразувател, трансформиращ събитието на биоразпознаване в електрически сигнал. Има два вида ЛОЧ биосензори: биоафинитетни и биокаталитични устройства. Биоафинитетните устройства се основават на селективно свързване на целевия аналит към повърхностно разположен лиганд (например антитяло, олигонуклеотид). Например, в хибридизационните биосензори има имобилизирани едноверижни ДНК сонди върху повърхността на трансдюсера. Когато се образува дуплекс, той може да бъде открит след свързването на подходящ индикатор за хибридизация. От друга страна, в биокаталитичните устройства се използва имобилизиран ензим за разпознаване на целевия субстрат. Например сензорни ленти с имобилизирана глюкозооксидаза за детекция и мониторинг на диабетни състояния (за повече информация вижте ОР3).
Клетъчни изследвания: Използвайки ЛОЧ устройства, може да се извършат и различни клетъчни експерименти. Единичната клетка е позиционирана в микроканала на предварително определено място, което улеснява нейната работа и манипулация. Микросистемата позволява работа с малки обеми течност, съдържаща малки количества аналит. ЛОЧ системите също така осигуряват прецизен контрол на локалната среда около клетката, като наблюдават физичната или химичната природа на повърхността, към която клетката се придържа, локалното рН и температура. Когато клетката трябва да бъде изложена на различен тип стимули, могат да се използват многобройни и често сложни компоненти за работа с течности. Ако клетката е обект на допълнителен анализ, лизисът и необходимите аналитични методи също могат да бъдат въведени на същата платформа. По този начин се избягва загубата или разреждането на пробата, което неизбежно би настъпило, ако се използват множество устройства.
Разработване на лекарства: Индустрията има нужда както от разработването на нови лекарства, така и от прогнозирането на тяхното потенциално поведение в живите системи. Имено във връзка с това са намерени и редица аналитични приложения на ЛОЧ системите: например аналитични системи за наблюдение и оптимизиране на производството на протеинови лекарства като терапевтични антитела; анализи, базирани на първични човешки клетки, които биха могли да предскажат ефективността при клинични изпитвания при хора. Тези ЛОЧ системи са доказано високо възпроизводими, лесни за манипулиране и могат да се използват рутинно.
„ОМИКС“ анализи за разкриване на генетична архитектура на често срещании заболявания
Идентифицирането на генетични маркери, които са свързани със специфична характеристика на дадено заболяване, е ключов въпрос при оценката на риска от заболяване. Тъй като генетичната информация на индивида остава предимно непроменена, мутиралите последователности могат да бъдат надеждни маркери за определени заболявания. В това отношение едно от важните приложения на „ОМИКС“ технологииите са пълногеномни изследвания на асоциации (GWAS). Те могат да идентифицират общи генетични варианти, обикновено единични нуклеотидни полиморфизми (SNP), свързани с определени характеристики на заболяването. Като цяло информацията за SNP се събира от две групи, група пациенти и здрава контролна група. След това се анализира статистически и се идентифицират единичните нуклеотидни полиморфизми, свързани със специфичните характеристики на заболяването на съответната група пациенти.
Например, вариациите в гена на аполипопротеин Е (APOE) са добре познат генетичен фактор, който е свързан с късното начало на болестта на Алцхаймер. След оценката на 502,627 единичните нуклеотидни полиморфизмa при 1086 пациенти с Алцхаймер, беше показано, че rs4420638 на хромозома 19 е най-силният маркер, диференциращ пациентите с Алцхаймер от контролната група. Друг важен успех се постига при изследване на наследствени ракови заболявания. BRCA1 и BRCA2 гените са едни от най-важните генетични маркери за наследствен рак на гърдата и яйчниците. Тези гени кодират туморни супресорни протеини, които помагат за възстановяване на увредената ДНК чрез хомоложна рекомбинация. Някои мутации в BRCA1 и/или BRCA2 значително повишават риска от развитие на рак на гърдата и/или яйчниците. За BRCA1 са открити две мутации: 185delAG и 5382insC. Приблизително 55–65% от жените, които наследяват една от вредните мутации на BRCA1, и около 45% от жените, които носят BRCA2 мутация, са развили рак на гърдата до 70-годишна възраст. С помощта на секвениране от следващо поколение са идентифицирани успешно и редица други маркери за заболявания като автозомно-доминантен колоректален рак, синдром на Ли—Фраумени, муколипидоза IV и хипертрофичната кардиомиопатия.
Въпреки това, за най-често срещаните заболявания като диабет, затлъстяване, шизофрения и аутизъм е отговорна комбинация от множество генетични фактори, както и фактори на околната среда. Все по-голям брой доказателства сочат, че генетичните маркери обикновено обясняват само част от общата вариация на заболяването. Един от липсващите решаващи фактори са епигенетичните вариации. В литературата вече има съпбщения, че различни епигенетични модификации са свързани с ранния стадий на различни видове рак. Освен това е добре известно, че колоректален рак се идентифицира по-често при мъжете, отколкото при жените. Ето защо се предполага, че естрогенът може да помогне за потискане на този тип раково заболяване. В допълнение, епигенетичните профили на съседна лигавица и проби от несъседна лигавица на 95 пациенти с колоректален рак разкриват, че промоторът на гена MGMT, кодиращ протеин отговорен за репариране на ДНК, често е метилиран. Понастоящем са идентифицирани хиляди геномни локуси, които са свързани с различни човешки заболявания. Трудностите обаче възникват, когато тези гени трябва да бъдат характеризирани в контекста на молекулярната патофизиология и съответните взаимодействащи гени и пътища.
Прилагане на „ОМИКС“ подход в лечението на заболявания
Основната цел на персонализираната медицина е да вземе решение за най-ефективния вариант за лечение на индивида. В тази връзка, едновременното количествено определяне на множество протеинови маркери може да играе важна роля при подтипирането на тумори и избора на оптимизирани терапии за всеки подтип. Високопроизводителните техники, базирани на количествено определяне на протеини в единични клетки, като CyTOF, могат да бъдат отлични алтернативи на имунохистохимичните подходи.
Например, през последното десетилетие се появи нов подход за лечение на рак – позволяващ на имунната система на пациента да се бори с неговия или нейния рак, наречен трансфер на осиновителни клетки. Мултиформеният глиобластом (GBM) е най-честият и агресивен вид злокачествен мозъчен тумор. Въпреки че GBM се лекува с хирургично отстраняване, лъчетерапия и химиотерапевтични методи, не се наблюдават забележими ефекти. През последните 20 години бяха проведени множество клинични проучвания за използване на имунната система за лечение на рак като GBM. Сред многобройните подходи за трансфер на осиновителни клетки, особено внимание се обръща на ваксините, базирани на дендритни и Т-клетки. Те могат да проникнат и да предизвикат противотуморен отговор в мозъка и показват голям потенциал за ефективно убиване на различни видове рак, включително злокачествени и напреднали видове. Автоложните дендритни клетки, получени от туморна тъкан или под формата на туморен лизат на пациент, могат да се култивират in vitro в присъствието на тумор-асоциирани антигени (TAAs), метод, наречен „пулсиране“. Импулсните автоложни дендритни клетки се въвеждат отново в пациента, за да стимулират специфична, клетъчно медиирана, антитуморна цитотоксичност срещу мултиформения глиобластом и други злокачествени ракови заболявания. По-революционни подходи, също са били прилагани като напр. опити за конструиране на специфични имунни клетки с помощта на нуклеази с цинкови пръсти (ZFNs) и CRISPR технология.
Всяка година хиляди пациенти се подлагат на трансплантация на органи или хемопоетични стволови клетки. Въпреки това, смъртността сред такива пациенти остава много висока. Стандартната процедура за съпоставяне на донори с реципиенти включва типизиране на човешки левкоцитен антиген (HLA). Въпреки това вече е ясно, че не-HLA фактори също могат значително да повлияят върху приемането / отхвърлянето на транспланта. За да се преодолее това, могат да се използват много от „ОМИКС“ приложенията за определяне на оптимални съвпадения донор-реципиент, както и за изследване на различни маркери на отхвърляне. Например, може да се използва секвенирането на ДНК за оценка на тежестта на отхвърлянето на орган, както и за едновременно откриване на евентуалното присъствие на вирусна ДНК като маркер за инфекция. За оценка на съвместимостта донор-реципиент могат да се използват и допълнителни „ОМИКС“ данни, като експресия на РНК или протеин. По този начин интеграцията между няколко „ОМИКС“ технологии може да се използва като полезен инструмент в трансплантационната биология.
Освен това микробиомът много често също е причина за редица човешки заболявания. Докато причинно-следствената връзка е проста в геномните данни, където ДНК влияе на фенотипа, много по-трудно е да се разгадае дали съставът на микробиома е причина или следствие от заболяване. Въпреки това е очевидно, че пациентите с възпалително заболяване на червата, диабет тип 2 и затлъстяване имат различни микробиомни профили от тези на здрави контроли. В допълнение, микробиомът има голямо влияние върху имунната функция, която в някои случаи е предполагаемо причинно свързана с болестта при животински модели. Тъй като нашето разбиране за микробиома напредва, интегративната оценка на тези и други данни за „ОМИКС“ технологиите ще помогне за по-доброто ни разбиране на човешките заболявания. Наскоро беше доказано, че човешките генетични профили влияят на цялостния състав на чревната микробиота. Освен това е доказано, че взаимодействията между човешката генетика и микробиомите влияят върху проявата на различни заболявания. По същия начин, метаболитното сигнализиране между гостоприемниците и техните микробиоми се превърна в област на активно изследване и има все повече доказателства, че редица метаболити, секретирани от чревни бактерии, могат да играят роля в заболяванията при хората. Следователно е очевидно, че интегрираният анализ на генома, метаболома, микробиома и други „ОМИКС“ профили ще осигури средства за подобряване на здравето и борба с болестите.
„ОМИКС“ технологиите за борба със заболяванията – бъдещи преспективи
Друга важна цел на персонализираната медицина е да предотврати развитието на различни заболявания преди появата им. Настоящите превантивни лечения са ограничени до хирургия – отстраняване на тъкан или орган, ако човек притежава съответните ракови маркери. Този подход обаче не е приложим за заболявания като Алцхаймер, болест на Хънтингтън и вродена мускулна дистрофия. Един от последните подходи за справяне с подобни проблеми е диетичното лечение, базирано на нутригеномика. „ОМИКС“ профилирането може да бъде ефективен подход при откриване на мащабни метаболитни промени, може да покаже специфични за пациента тенденции и да осигури статистически значими данни чрез многократни измервания.
Приложение на „ОМИКС“ технологиите в токсикологията
Използването на „ОМИКС“ инструментите за оценка на състояние на околната среда става все по-важно в процесите на управление и оценката на риска. „ОМИКС“ подходите позволяват свързване на молекулярни събития и неблагоприятни ефекти с биологични нива на организация, подходящи за схемите за оценка на риска. Анализът на нивото на РНК транскриптите или клетъчната протеомика вече придоби особен интерес. Тези проучвания помогнаха за по-доброто разбиране на взаимодействията между стресовите фактори и организма, но също така и за разкриването на начините на действие на различни токсични вещества. Следователно, от токсикологична гледна точка, „ОМИКС“ техниките позволяват ефективно и точно генериране на важна информация за индуцирани от веществото молекулярни смущения в клетките и тъканите, които са свързани с неблагоприятни крайни резултати.
Клетъчните регулаторни пътища включват набор от различни (био)молекули, които се характеризират с различни физикохимични свойства и показват сложни нелинейни взаимодействия. Прилагането на само на един „ОМИКС“ подход може да позволи измерването на биомолекули от специфичен тип, РНК или протеини, и често те дори не са съвкупността от биомолекули от един тип, а по-малка подгрупа от тях. Например, откриването на къси и дълги РНК или къси пептиди и протеини изисква различни транскриптомни или протеомни подходи. Само използването на мулти-“ОМИКС“ анализи, известни също като подходи за кръстосани „ОМИКС“ изследвания, позволява директно да се идентифицира отговора на живите системи към дадена химическа експозиция. Поради това използването имено на мулти-“ОМИКС“ стратегии има важно значение при осъществяване на токсикологични изследвания.
Прилагането на такъв системен токсикологичен подход, интегриращ класическата токсикология с количествен анализ на големи молекулярни мрежи и функционални промени, настъпващи на множество нива на биологична организация, е обещаващ при анализиране на пълния спектър от токсичност на различните ксенобиотици. Подходът при системната токсикология включва следните елементи:
- Абсорбция и разпределение на ксенобиотика в биологичната система.
- Трансформация на ксенобиотика и генериране на токсични и/или нетоксични междинни продукти.
- Взаимодействие на ксенобиотика и/или неговите продукти с клетъчните мишени.
- Модификации в клетъчните молекули, включително гени, протеини и липиди.
- Структурни прояви на токсичност за целеви органи.
- Функционални прояви на токсичност.
- Елиминиране на ксенобиотика и/или неговите междинни продукти от биологичната система.
Токсикологични изследвания с „ОМИКС“ анализи
За по-добро разбиране на клетъчния отговор при излагането на дадено химическо вещество, изследванията трябва да бъдат фокусирани върху различни нива: транскриптомика, протеомика, фосфопротеомика и метаболомика. В поределени конкретни случаи трябва да се има предвид и епигеномиката.
Транскриптомика. Основната цел на транскриптомиката е цялостното откриване на РНК в клетката. При прилагане на транскриптомен анализ, специфичният метаболитен отговор се открива на базата на изследването на известен набор от целеви гени, като се проследява тяхната специфична експресия. Прилаганите техники за определяне на промените в генната експресия в отговор на излагане на ксенобиотик включват: хибридизация (Northern blot), количествен PCR в реално време (QRT-PCR), субтрактивна хибридизация, сериен анализ на генната експресия, микрочип анализ и следващо поколение секвениране (NGS). В зависимост от целта на изследването, една или повече от тези техники могат да бъдат приложени за дефиниране на частични или глобални профили на експресия в тестваната биологична проба. Въпреки това, най-често използваните техники за профилиране на генна експресия са QRT-PCR, микрочип анализ и NGS. Ако целта е да се изследва експресионния профил на единичен или ограничен брой транскрипти, QRT-PCR анализът е методът на избор. QRT-PCR анализът е сравнително проста техника, която включва обратна транскрипция на иРНК, последвана от PCR амплификация на получените кДНК, като се използват праймери, специфични за целевия ген. Количеството на PCR амплифицираните генни продукти се определя количествено. Тъй като QRT-PCR може точно да определи експресията на единичен или ограничен брой транскрипти, той има някои ограничения от гледна точка на системната токсикология. За да се проучи токсичността на системно ниво на даден ксенобиотик, е необходимо да се използват техники с висока възпроизводимост, които са в състояние да определят нивата на експресия на целия транскриптом. Ето защо микрочип анализът и секвенирането от следващо поколение са най-популярните глобални техники за анализ на транскриптоми, прилагани в токсикологичните изследвания.
Микрочип техниката представлява основен пробив в анализите в ерата на секвениране на генома. Подобно на техниката на ДНК хибридизация (Southern blot), микрочип подходът се основава на способността на ДНК молекулите да се свързват или хибридизират по начин, специфичен за нуклеотидната им последователност. Микрочиповете може да се разглежда като хибридизация с висока производителност, при която почти всички гени, които се експресират в биологичната проба в даден момент, могат да бъдат открити едновременно. Следователно, този тип анализ позволява да се открият малки разлики в глобалните профили на генна експресия в дадена биологична проба в отговор на излагане на ксенобиотик(ци). Техниката на микрочиповете включва изолиране на висококачествена РНК, обратна транскрипция на иРНК за синтезиране на кДНК, синтез на кРНК и маркиране за генериране на „сонди“, хибридизация на „сондите“ с „мишени“, присъстващи в микрочипа, откриване на интензитета на сигнала на хибридизирания комплекс проба-мишена и анализ на получените данни, за да се определят нивата на експресия на интересуващите ни гени. Анализът, базиран на микрочипове, се използва в различни области като токсикология на околната среда и работно място, разработване на лекарства и др. Получените данни предоставят моментна снимка на всички гени, чиито нива на експресия са засегнати в отговор на излагане на ксенобиотика.
Секвенирането от следващо поколение (NGS) е най-скоро разработеният глобален транскриптомен анализ. Тази техника може да се приложи за определяне на глобален профил на генна експресия в РНК, получена от различни биологични проби. Ключовите стъпки, включени в NGS, са изолиране на РНК, отстраняване на РНК молекули като рибозомна и глобинова, подготовка на секвенционни библиотеки, PCR амплификация и секвениране на библиотеките. Получените данни се анализират и се определя количеството на отделните транскрипти.
Протеомика: Транскриптомиката често е първият избор за изследвания на ниво система, тъй като през годините са разработени множество утвърдени методи за измерване. Въпреки това, протеиновите промени могат да се считат за по-близки до съответното функционално въздействие на изследван стимул. Въпреки че експресията на иРНК и протеин са тясно свързани чрез процеса транслация, тяхната корелация е ограничена. Нивата на иРНК транскрипти обясняват само около 50% от вариацията на нивата на протеин. Това се дължи на наличието на допълнителни нива на регулиране на протеините, включително скоростта им на транслация и разграждане. Освен това, регулирането на протеиновата активност не спира на ниво експресия, а често се контролира допълнително чрез посттранслационни модификации. От гледна точка на токсикологията такива примери за важна пост-транскрипционна регулация включват: строгата регулация на протеиновите нива на р53 и индуцирания от хипоксия-фактор (HIF). За тях е характерна бърза пост-транскрипционна стабилизация, например при увреждане на ДНК и хипоксични състояния. Друг пример е регулирането на няколко клетъчни реакции в отговор на стрес (например оксидативен стрес) на ниво транслация на протеини; и регулиране на реакцията на клетъчния стрес чрез каскади на фосфорилиране на протеини. Най-често прилаганите протеомни анализи, които са от ключово значение за токсикологията, включват: 2D – електрофореза в полиакриламиден гел, течна хроматография, мас спектрометрия и анализ на посттранслационните модификации.
2D полиакриламидната гел електрофореза (2DGE) се използва за изследване на промени в протеома въз основа на промени в експресията на дадени протеини. Техниката 2DGE разчита на разделянето на протеини въз основа на тяхното pH (заряд), както и техния размер. Тя може да раздели и визуализира до 2000 протеина в рамките на един гел. Първото измерение, което е известно като изоелектрично фокусиране (IEF), разделя протеините по тяхната изоелектрична точка (pI). Второто измерение допълнително разделя протеините по тяхната молекулна маса. Най-съвременният софтуер за получаване и анализ на изображения позволява сравняването на контролни и третирани проби, като помага диференциално по техния относителен интензитет да се идентифицират протеините, подложени на специфична регулация при дадените условия. Вариант на 2DGE е диференциалната гел електрофореза (DIGE), която се основава на маркиране на протеини с флуоресцентни цианинови багрила (Cy2, Cy3 и Cy5). Въпреки че 2DGE е мощен инструмент за идентифициране на много протеини, подходът има своите ограничения. Основният недостатък е, че не всички протеини могат да бъдат разделени чрез IEF, като например мембранни, основни, малки (< 10 kDa) и големи (> 100 kDa) протеини. Второто ограничение е, че протеини в по-ниски концентрации често са маскирани от тези с висока концентрация в сместа.
Други често използвани техники са мас-спектрометрия с течна хроматография (LC MS/MS). LC подходът използва разликите във физикохимичните свойства на протеините и пептидите, т.е. размер, заряд и хидрофобност. 2D-LC може да се приложи за фракциониране на протеинови смеси на две колони с различни физикохимични свойства за максимално разделяне на протеини и пептиди в сложни смеси. Счита се, че мас спектрометрията е ключова технологична платформа за токсикопротеомиката. Основните му предимства включват ненадмината чувствителност, подобрена скорост и способност за създаване на масиви от данни с висока пропускателна способност. Поради високата прецизност на MS, в тъканите и биологичните матрици могат да бъдат открити пептиди в фемтомоларния (10-15) до атомоларния (10-18) диапазон. Това е изключително полезно при сравнителния анализ, при който се извършва едновременен анализ на контролни и третирани проби. По този начин може да се постигне цялостно разбиране за това как стимулите влияят на протеома с последващото идентифициране на потенциални биомаркери.
Тъй като системната биология изисква точно количествено определяне на определен набор от пептиди/протеини в множество проби, са разработени и целеви подходи за количествено определяне на биомаркери. Такава техника е мониторингът на избрана реакция (SRM). SRM измерва пептиди, получени от ензимното разграждане на протеома с помощта на тройно – квадруполен MS. Протеомният експеримент, базиран на SRM, започва с избор на списък от целеви протеини, получени от предходни експерименти или търсене на данни, като например метаболитна карта или налична литература. Тази стъпка е последвана от 1) избор на целевите пептиди, които оптимално и уникално представляват зададената цел, 2) избор на набор от подходящи SRM преходи за всеки целеви пептид, 3) откриване на избраните пептидни преходи в пробата, 4) оптимизиране на параметрите на SRM анализа и 5) прилагане на анализите за откриване и количествено определяне на протеините/пептидите. Основните предимства на SRM техниката са: 1) възможности за наблюдение на десетки до стотици протеини по време на една и съща серия, 2) възможности за абсолютно и относително количествено определяне, 3) висока възпроизводимост на данните и 4) получаване на абсолютна молекулярна специфичност. Съществуват обаче и някои ограничения на тази техника: 1) само ограничен брой измерими протеини могат да бъдат включени в една и съща серия и 2) дори с високата си чувствителност тази техника не може да открие всички протеини, присъстващи в организма.
Използван е и друг целеви подход, базиран на MS, известен като наблюдение на паралелни реакции (PRM). Той е съсредоточен върху използването на следващо поколение, оборудвани с четириполюсен, с висока разделителна способност и точни инструменти мас спектрометри (главно системата Orbitrap MS). Тази техника е тясно свързана със SRM, но позволява паралелно измерване на всички продукти на фрагментация на даден пептид.
Друг ключов подход е анализът на посттранслационните модификации (PTM), възникнали поради токсичното излагане. Те представляват основен механизъм за регулиране на клетъчния протеом. PTMs са химични модификации, които имат важна роля в регулирането на активността, локализацията и взаимодействията на клетъчните биомолекули. Идентифицирането и характеризирането на протеините и техните посттранслационни места са много важни за биохимичното разбиране на PTM пътищата. Това знание дава по-задълбочена представа за възможната регулация на клетъчната физиология, предизвикана от постранслационни модификации. Някои примери за PTMs включват фосфорилиране, гликозилиране, убиквитиниране, нитрозилиране, метилиране, ацетилиране, липидиране и протеолиза. През последното десетилетие протеомиката, базирана на MS, се оказа мощен инструмент за идентифициране и картографиране на PTM. Освен това, базираните на MS подходи се възползваха значително от напредъка в инструментариума на MS, което прави анализа по-чувствителен, точен и с по-висока разделителна способност за откриване на протеини в по-ниски концентрации.
Метаболомика: Метаболомиката е анализ различен от другите „ОМИКС“ анализи, тъй като се занимава с колекция от химически силно хетерогенни молекули. Метаболомът обикновено се дефинира като пълен баланс на всички малки метаболити (<1500Da), открити в конкретна клетка, орган или организъм. Благодарение на инициативи като проекта Human Metabolome, ендогенният метаболом на човешки и животински моделни организми до голяма степен е картографиран. При изследването на метаболома най-често се използва ядрено-магнитен резонанс (ЯМР), или газова или течна хроматография, последвана от MS. Подходите, базирани на ЯМР, имат способността да определят количествено изследваните метаболити и представляват златния стандарт за изясняване структурата на неизвестни метаболити. Подходите, базирани на MS, превъзхождат ЯМР по отношение на чувствителност и могат да се изпълняват по нецелеви или целеви начин.
Метаболомиката се различава от протеомиката и транскриптомиката в няколко аспекта:
(i) установява специфичния клетъчен отговор на различни нива на метаболитните пътища, и
(ii) едновременно улавя наличието на молекули от метаболитни пътища, които реагират в различни времеви диапазони.
Развитието на метаболомиката направи нейното прилагане в много изследвания, свързани с токсикологията, рутинно и много полезно. Тя има забележителен потенциал при скрининг на индуцирана от лекарства клетъчна или органна токсичност. Бързата оценка на биологичните проби, заедно с математически и статистически анализ (хемометрия) на получените данни служи като мощен инструмент за оценка на безопасността на лекарствата. Например, ако лекарство или химическо вещество може да причини чернодробна токсичност чрез индуциране на клетъчен оксидативен стрес, метаболомният анализ на биологичната проба, изложена на лекарството, може да предостави директна информация за метаболити, които са маркери за оксидативен стрес. Тя може също така да идентифицира метаболити, които се считат за известни биомаркери на чернодробно увреждане, което предполага чернодробна патология. В допълнение, метаболомиият анализ може да предостави информация и за метаболити, които са непряко свързани с токсичността.
Метаболомиката има няколко предимства пред конвенционалната оценка на клиничната патология. Например, проучване, изследващо неизвестно съединение, показва, че това съединение повишава нивата на серумния холестерол. При използване на метаболомика се наблюдава, че освен холестерола, същото съединение води до повишаване и на няколко фитостерола, което показва, че по-високият холестерол е резултат от абсорбцията на стероли в червата. Такива констатации ясно показват, че метаболомиката има много по-голям потенциал по отношение на идентифицирането на точни токсикологични крайни ефекти.
Епигеномика. Основният фокус на епигеномиката е да изучава химичните модификации на ДНК и протеините, отговарящи за триизмерната структура на геномната ДНК. В наши дни метилирането на ДНК се оценява чрез модифициран подход за секвениране на генома (Methylome-seq). Този подход обаче все още е свързан с значителни разходи. Ето защо най-често се използват целевите подходи, базирани на микрочипове. ДНК метилирането включва две различни химични модификации с различни функционални последователности – 5-метилцитозин и 5-хидрокси-метилцитозин. Модификациите на хистони се анализират с помощта на метода на хроматин-имуно-преципитация, като се прилагат антитела, специфични за дадената модификация, последвано от секвениране (ChIP-seq). Обикновено, за да получите изчерпателна картина, трябва да бъдат открити няколко модификации. Това изисква извършване на няколко ChIP-seq анализа едновременно. Тъй като ChIP-seq се нуждае от повече изходен материал от другите епигеномни подходи, такава стратегия може да бъде трудна за прилагане при токсикологични изследвания. ATAC-seq е алтернативен подход, който не изследва директно химическите модификации, а по-скоро една от основните последици от модификациите, достъпността на ДНК.
Въпреки това, знанията за участието на регулаторни пътища и специфични епигенетични модификации все още са оскъдни. Следователно епигеномиката е с ограничена стойност, когато се използва като подход за интегриране на данни, базиран на метаболитни пътища. Въпреки това, епигеномните данни се оказват много ценни за проучвания на различни поколения или при използване на „ОМИКС“ данни за краткосрочна експозиция за предсказване на дългосрочни ефекти от такава.
Приложения на „ОМИКС“ технологиите за оценка на токсикологичен риск и подготовка на регулаторни документи
През последните десетилетия „„ОМИКС““ технологии бяха широко използвани в различни изследвания и беше доказано, че те са в състояние да осигурят задълбочена представа за биохимията и физиологията на клетката и всеки вреден ефект на ксенобиотиците. Това доведе до ентусиазирано одобрение от изследователите токсиколози. Бяха изразени надежди, че „ОМИКС“ технологиите ще осигурят инструментите за идентифициране на набор от биомаркери за неблагоприятни ефекти и техните начини на действие. По този начин прогнозирането на въздействието върху човека по време на оценката на опасността от различни химични вещества ще бъде подобрено и ще се даде начало на разработването на алтернативни методи на изпитване върху животни. Въпреки това прилагането на „ОМИКС“ анализите в регулаторната област остава в най-добрия случай предпазлив.
Ето защо Европейският център по екотоксикология и токсикология на химичните вещества (ECETOC) организира серия от семинари за оценка на възможностите и предизвикателствата на „ОМИКС“ техниките при оценка на химическия риск. Последният семинар заключи, че „ОМИКС“ подходите допринасят за отговорите на съответните въпроси при оценката на риска, включително:
(i) класификацията на веществата и определение на сходство,
(ii) изясняване на начина на действие на веществата, и
(iii) идентифициране на видова специфичност на ефектите и демонстриране на значимост за човешкото здраве.
Въпреки това беше установена необходимост от повишаване на възпроизводимостта на събирането на данни от „ОМИКС“ анализите, както и от определяне на най-добрите практики. Освен това регулаторното използване на всеки метод за изпитване е тясно свързано със специфичната правна рамка, която е от значение за изследваното вещество. Имайки предвид Регламента за регистрация, оценка, разрешаване и ограничаване на химикали (REACH) (ЕП и Съвета на ЕС, 2006 г.), „базираните на „ОМИКС“ данни биха могли да бъдат използвани за регулаторни заявления“. За да се използва „ОМИКС“ в досиетата на REACH, Регламентът REACH изброява различни изисквания: специфична стандартна информация, която обхваща специфични физико-химични, токсикологични и екотоксикологични граници. Тези данни се оценяват по време на оценката на опасността и риска и се анализират, за да се определят съответно алтернативи за управление на риска. Прилагането и интегрирането на „ОМИКС“ инструменти може да бъде полезно при различни нива на идентифициране и оценка на регулаторните опасности, като допринася за:
- Класификация и етикетиране (C&L) на вещества.
- Значимост на доказателствата (WoE) за изясняване на механизма на действие (MoA) на изследваното вещество.
- Обосноваване на химическото сходство.
- Определяне на изходните точки (PoDs) за оценка на опасността.
- Демонстрация на видово специфични ефекти и значимост за човешкото здраве.
Бързото развитие на „ОМИКС“ технологиите поставя няколко предизвикателства за улесняване на използването им за оценка на опасностите, особено от законодателна гледна точка. Набора от „големи данни“ трябва да бъде кондензиран, като се прилагат сложни подходи и специфични знания, за да се получи информация, която е уместна за оценка на опасностите. Освен това знанията в тази бързо развиваща се област не са непременно познати на много изследователи, работещи в законодателната област. Съответно, липсата на регулаторно одобрение на „ОМИКС“ технологиите е свързана не само с липса на рамки за най-добри практики и критерии за качество, но и с липса на доверие в анализа и нивото на несигурност по отношение на това какво представлява достатъчно данни. Учените и законодателите трябва първо да натрупат опит с данните, получени от тази нова технология, а след това да изградят увереност в нейната приложимост.
„ОМИКС“ анализи на околната среда и биоразнообразието
Като цяло повечето от екологичните проучвания включват култивиране на изолирани микроорганизми или амплифициране и секвениране на консервативни гени. Съществуват обаче някои трудности при разбирането на сложния и голям брой различни микроорганизми в околната среда. Това доведе до разработването на нови техники, позволяващи обогатяване на пробите за анализ на специфични микроорганизми, такива като изолиране и изследване на еднични клетки. С други думи, усъвършенстваните инструменти в метагеномиката и едноклетъчната геномика (SCG) проправиха пътя към нови методи за изучаване и разбиране на околната среда.
Ранните екологични проучвания на разнообразието на организмите изискваха култивиране на проби, за да се увеличи количеството ДНК, преди да бъдат конструирани съответните геномни библиотеки. По това време секвенирането на 16S и 18S рРНК беше най-добрият вариант за определяне на биоразнообразието в околната среда. Въпреки това стана ясно, че по-голямата част от микробните съобщества представляват некултивируеми видове. За щастие, полимеразната верижна реакция (PCR) на рРНК позволява достъп както до култивируеми, така и до некултивируеми видове. Тъй като PCR може да се извърши директно върху проби от околната среда без клониране, той може да се използва за амплифициране на целеви гени директно от околната среда.
Значението на секвенирането както на некодиращи рРНК, така и на гени, кодиращи протеини, нарастна, със специфичния интерес към реконструкция на бактериални геноми. Цялостното вземане на проби от всички гени от всички организми, съществуващи в сложно микробно съобщество, е постижимо чрез метагеномното секвениране. Използването на този метод позволява да се оцени бактериалното разнообразие и да се открие изобилието от микроорганизми в конкретна среда. Освен това прави възможно възстановяването на пълни геноми на некултивируеми микроорганизми. В допълнение към откриването на нови видове археи, бактерии, протозои, водорасли, гъби и еукариотни видове, тази техника е от решаващо значение за реконструкцията на вирусни геноми. Това беше критичен напредък, като се има предвид, че вирусите нямат общ универсален филогенетичен маркер като бактериална 16S рРНК или еукариотна 18S рРНК.
Друг подход е метатранскриптомният подход, който вместо да използва геномна ДНК (гДНК) включва събирането на тотална РНК изследваното съобщество. Така получената проба се използва за конструиране на библиотеки от кДНК, които в последствие се секвенират. Въпреки че РНК е по-малко стабилна от ДНК, тя дава моментна снимка на текущото състояние на съобщетвото, като разкрива индуцираните и репресирани гени. Понастоящем, едно от най-важните метатранскриптомни изследвания, е това на съобществата на морските води.
Едноклетъчна геномика (SCG)
Метагеномното секвениране е полезен инструмент за разбиране на екологичните съобщества. Въпреки това, сглобяването на каталози от гени и композитни геноми може да бъде предизвикателство. Трудно да се направи и разлика между гени, които произлизат от едни и същ или от различни организми в геноми, които вече са сглобени (Фиг. 3). Следователно има значителен интерес към разработването на система за разбиране на организацията на откритите гени и метаболитни пътища в рамките на един геном.

Фиг.3. Метагеномика срещу едноклетъчна геномика
Предизвикателството на хетерогенността на пробата може да бъде частично решено чрез използване на две техники – мащабиране и дълбоко секвениране. Необходими са различни подходи за сравняване на метагеномни проби, събрани от различни среди и за разкриване на състава и организацията на геномите на микроорганизмите в околната среда. Един от подходите е обогатяване на културата на конкретни организми въз основа на техните специфични екологични функции. Този тип целенасочен метагеномен подход позволява развитието на композитни микробни геноми. Освен това, към некултивируемостта на много организми, се добавят и други проблеми, като например в случаите когато по-бързо растящите микроорганизми изместват по-бавните, което впоследствие води до допълнителни отклонения в резултатите.
Следователно, вместо да бъде култивирана, една сложна проба може да бъде обогатена на целевата клетъчна популация, използвайки флуоресцентно активирано клетъчно сортиране (FACS). Прилагането на този подход помага за сортиране на клетките въз основа на тяхната форма, размер и плътност. Като алтернатива, специфичните организми от интерес могат да бъдат обогатени чрез работа с малък брой клетки, които притежават специфична функция в околната среда. С развитието на техниките за амплифициране на целия геном (WGA) (например, амплификация с множество измествания (MDA) или амплификация с въртящ се кръг (RCA)), гДНК на ограничен брой клетки може да бъде амплифицирана и секвенирана. Въпреки това, WGA техниките създават потенциални отклонения, тъй като изобилието от специфични последователности варира и следователно не се амлифицират еднакво. Следователно, амплификацията на гДНК на определени популации с ограничен брой клетки компрометира количествения анализ на метагеномиката.
Последните постижения в амплификационните техники на единичен геном позволяват прилагането на SCG чрез физическо разделяне на клетките (обикновено чрез FACS върху 96-ямкови плаки), клетъчен лизис и WGA. След това така амплифицирания геном от една клетка може да бъде секвениран. Докато метагеномиката се постига чрез събиране на микробните съобщества и извличане и секвениране на общата ДНК, SCG отделя и изучава отделни клетки от съобщетвата на микроорганизмите. Получените секвенционни данни предоставят количествена информация за геномната вариабилност в микробните популации. Инсерциите, делециите, дупликациите и геномните пренареждания могат да бъдат изследвани на ниво една клетка. По този начин сложните метаболитни пътища могат да бъдат анализирани за отделна клетка.
Изолиране и обработка на единична клетка
Изучаването на генома и неговата регулация на популационно ниво се извършва чрез анализ на милиони клетки наведнъж. Въпреки това, подобни изследвания не предоставят поглед върху хетерогенността в биологичните системи, нито характеризират текущото състояние на популацията. Ето защо SCG придобива все по-голяма популярност за изучаване както на култивируеми, така и особено на некултивируеми микроорганизми. Процесът за получаване, размножаване и секвениране на генетичния материал от живи или мъртви клетки е сравнително прост. Първо клетката трябва да бъде изолирана и лизирана и след това освободеният генетичен материал се амплифицира и може да се конструира геномната библиотека.
Един от подходите за изолиране на единични клетки е микроманипулацията. Интересуващите ни клетки се идентифицират и изследват микроскопски. Подходящите клетки се изолират с помощта на микропипета, лазерен източник, оптична пинсета или чрез микрофлуиден поток в реално време. С помощта на микрофлуидика може да се избере желания фенотип, корелиращ със специфичен геном. Освен това клетките могат лесно да бъдат наблюдавани преди улавяне.
Друг подход е случайното капсулиране. Клетките се избират на случаен принцип чрез серийно разреждане. След това разредената проба може да бъде прехвърлена в микроямки или клетките могат да бъдат капсулирани чрез микрокапчици. С помощта на тази техника отделните клетки могат да бъдат разделени, обработени и подложени на геномен анализ.
Поточната цитометрия (FACS) е най-популярната процедура за произволно капсулиране. FACS позволява изолирането на клетки, притежаващи специфични критерии, като размер, форма, цвят или дори наличие на специфични нуклеинови киселини или активности, като се използват флуоресцентни багрила (Фиг. 4). Едно от основните предимства на FACS е неговата висока пропускателна способност, висока скорост на сортиране и способност за разграничаване на живи клетки. Освен това, FACS може да открие наличието на клетки в капчица, да отхвърли празните капчици и да прехвърли клетките с желаните свойства в многоямкови / микротитърни плаки. След това клетките могат да бъдат лизирани и геномите могат да бъдат амплифицирани в единични ямки.
Друга възможност за изолиране на единична клетка е микрокапковата технология (Фиг. 4). Микрокапките са емулсията, образувана, когато клетките във водната фаза се смесват енергично с масло. Маслените капчици капсулират клетките във водната фаза. Първоначално се смяташе, че PCR, извършен върху емулсия, е много по-специфичен от анализа на клетките само във водната фаза. Предполага се, че добивите на реакционните продукти са по-големи и се образуват по-малко химерни странични продукти. Освен това, образуваните капчици обхващат ограничен брой шаблонни молекули (в идеалния случай само една). Последните разработки в микрофлуидиката позволяват да се контролира размера на капчиците (нанолитър или дори пиколитър), осигурявайки водни еднородни (монодисперсни) капчици в масло. Едно от основните предимства на двуфазната система от микрокапчици пред FACS е възможността за обработка на отделни клетки като отделни единици. Всяка капчица действа като независима ямка, където клетките могат да се отглеждат и по-късно да се проверяват за експресираните продукти. Освободената гДНК може ефективно да се амплифицира в микрокапчици и да се използва за подготовка на библиотека за секвениране. Клетките на бактерии, дрожди, растения, насекоми и бозайници могат лесно да бъдат изследвани с помощта на микрокапкова технология върху агароза или други микрогелове. Дори многоклетъчните организми могат да бъдат капсулирани и отглеждани в капчица. Хипотетично е възможно да се измери всяка секретирана молекула, за която съществува флуоресцентно белязан лиганд. Освен това може да се наблюдава активността на различни клетъчни протеини.

Фиг. 4. Техники за изолиране на единични клетки
Подходи за изследване на различни клетки
Живите клетки обикновено могат да бъдат класифицирани като бактерии, археи и еукариоти. Въпреки че вирусите не се считат за „живи“, те представляват важна част от научните изследвания за живота. За изследване на различните организми са разработени различни подходящи едноклетъчни анализи.
Вирусите присъстват практически във всяка среда. Те са най-разпространените и разнообразни биологични обекти. Въпреки това, за да се изолира единичен вирус и да се секвенира неговият геном, първо трябва да се установи подходяща култивируема система вирус-гостоприемник. Например, еукариотните водорасли са домакин на невероятно разнообразие от вируси. Въпреки това, използвайки както FACS, така и еднокапковите системи, вирусите теоретично могат да бъдат изолирани без зависимост от системата вирус-гостоприемник.
Археите и бактериите имат сходна клетъчна структура. Само разликите в клетъчния състав и организация разделят тези два домена. Бактериалните клетки обикновено са с диаметър 0,5–5,0 μm, докато археите могат да бъдат по-големи и да достигнат 15 μm в диаметър. По принцип всички описани по-горе методи могат да се използват за разделяне и обработка на единични археални и бактериални клетки. Въпреки това, при използване на FACS силните потоци могат да забавят растежа на тези организми.
Еукариотите се различават от другите домени на живот по наличието на мембранно ограничено ядро и органели. Те могат да бъдат многоклетъчни или едноклетъчни организми. Размерът на клетките обикновено варира от около 10-100 μm или те са десет пъти по-големи от бактериите. Разреждането, FACS и сортирането на капчици са подходящи методи за изолиране на еукариотни клетки.
Многоклетъчните организми теоретично също могат да бъдат изолирани и обработени по различни методи. FACS например може лесно да сортира многоклетъчни организми. Ако се инкубират в капчици за достатъчно време, едноклетъчните организми могат да синтезират протеини или лиганди и да имат възможност да се размножават, потенциално създавайки многоклетъчна структура.
В резултат на молекулярните изследвания на околната среда и екологията се придобиват все повече и повече знания за живите общности. С разработването на различни молекулярните инструменти, особено машини за секвениране, стана възможно да се секвенират цели съобщества от избрани среди. Последните постижения в едноклетъчните технологии улесняват изолирането и амплификацията на геномен материал от единични клетки и позволяват структуриране на множество секвенционни библиотеки. Освен това данните, получени от SCG, допълват данните, получени чрез метагеномика.
„ОМИКС“ подходи в индустриалната биотехнология и биопроцесното инженерство
Биотехнологията използва биологични процеси, организми или системи за генериране на продукти и технологии, които подобряват човешкия живот. Използването на биологични системи за производство на биопродукти с търговско значение е ключов компонент на биотехнологичната индустрия. Този биотехнологичен подход е намерил приложение в различни области: енергетика, получаване на различни материали, фармацевтична и хранителна промишленост, селско стопанство и козметика. Биопродуктите, произведени в резултат на биотехнологични процеси, обикновено са метаболити и протеини, които се получават от клетки, тъкани и органи. Биологичните системи, синтезиращи тези биопродукти, могат да бъдат естествени или модифицирани чрез генно инженерство, метаболитно инженерство, синтетична биология и протеиново инженерство. „ОМИКС“ технологиите имат голямо значение за биотехнологиите и метаболитното инженерство, като помагат при характеризирането и разбирането на метаболитните мрежи. За разработването на нови биотехнологични инструменти и за усъвършенстване на метаболитното инженерство могат да бъдат използвани много от знанията, придобити от „ОМИКС“ експериментите. Това позволява манипулирането на сложни биологични системи за създаване на стабилни индустриални стратегии за биопроизводство.
Биотехнологии, ръководени от „ОМИКС“ изследванията
„ОМИКС“ инструментите се използват все повече при разработването на биотехнологични процеси и производството на много жизненоважни продукти. Прилагането на тези технологии при характеризиране и разбиране на биологичните системи позволява да се предскажат и подберат подходящи фенотипове, което улеснява оптимизирането на биотехнологичното производство (по качество и количество) на търговски релевантни продукти (Фигура 5).

Фиг. 5. „ОМИКС“ инструменти в биотехнологиите
Производство на биогорива и биопродукти
Микробното производство на натурални съединения представлява привлекателна и по-устойчива алтернатива на традиционните нефтохимикали. Неговото прилагане доведе до появата на нарастващ брой от ценни естествени продукти и химикали. Например, използването на лигноцелулозна биомаса представлява икономичен подход за генериране на биогорива и биопродукти. Въпреки това, за да се постигне стабилно превръщане на евтини суровини в продукти с добавена стойност на промишлени нива са необходими систематични инженерни планове. Цикълът Проектиране-Създаване-Тестване-Обучение (Design-Build-Test-Learn) (DBTL) се превръща във все по-прилаган подход за експерименти в областта на метаболитното инженерство. Той представлява систематичен и ефективен инструмент за форсиране на усилията за развитие на биогорива и продукти на биологична основа. Цикълът DBTL използва in silico подход за проектиране и изграждане на генетични конструкции в микробни гостоприемници. След това информацията, получена от „ОМИКС“ технологиите, по време на тестовата фаза на цикъла, се прехвърля в процесите на обучение (Фигура 6). След това наученото се връща към новите цикли на проектиране, за да се постигне по-нататъшно разработване и оптимизация на индустриалните микроорганизми. По този начин се улеснява бързата оптимизация на микробните щамове свръхпродуценти на всяко химично съединение от интерес. Най-слабата точка в работния процес на цикъла на DBTL е процесът на обучение, тъй като математическите модели са толкова добри, колкото техните предположения. Следователно, са необходими както висококачествени, така и големи набори от „ОМИКС“ данни, за да може да се подобрят моделите за обучение и да се осигури повишена точност и надеждност на процеса.

Фиг. 6. DBTL цикъл за оптимизация на процесите за получаване на биогорива и биопродукти
Често в DBTL цикъла традиционният подход, прилаган в началните етапи на изследване, е използването на информацията за геномната последователност. Например, баркод секвенирането (Bar-seq) (метод, използващ къса част от ДНК от специфичен ген или гени) може да се използва за изследване на динамиката на популацията на Saccharomyces cerevisiae по време на култивиране в биореактор. При този анализ се използват делеционни библиотеки, които позволяват идентифицирането на факторите, които влияят върху различните мутантни фенотипи. Секвенирането на единични клетки, може да се използва за идентифициране на ключови мутирали промотори и тази информация да бъде използвана за регулиране на нивата на експресия и съответно на микробния растеж. Чрез прилагането на протеомни анализи са проектирани платформи за биосинтеза на поликетиди с цел in vitro производство на адипинова киселина в дрожди. Освен това, метаболомиката позволява оценка на метаболитните потоци, усвояването на източника на въглерод и дисбаланса на кофакторите, като познанията върху всички тези параметри допринасят за идентифицирането на тесните места в съответния метаболитен път. Такъв подход, на базата на метаболомен анализ, вече е използван за характеризиране на производството на канабиноиди в рекомбинантни щамове на S. cerevisiae. Канабиноидните аналози са предварително идентифицирани и чрез прилагането на метаболомика е проектиран и оптимизиран нов изопентенил дифосфат-байпас мевалонатен път в E. coli за производство на C5 алкохол. DBTL цикъла е използва от някои автор, за да модифицират Rhodosporidium toruloides, олеогенен вид дрожди, растящи върху лигноцелулозни материали, да синтезират дитерпенов ент-каурен, потенциално терапевтично средство, проявяващо антимикробно, противовъзпалително, диуретично, диуретично и противовъзпалително, сърдечно-съдово, диуретично, анти-СПИН и цитотоксичен ефект.
Селскостопанска и хранителна биотехнология
Последните иновации в селскостопанската биотехнология доведоха до нови сортове растения, създадени чрез рекомбинантна ДНК технология и отговарящи по-добре на пазарните изисквания и екологичните предизвикателства. Всъщност в селскостопанската биотехнология „ОМИКС“ инструментите се използват за подобряване на желаните фенотипни характеристики (например цвят, вкус, устойчивост на суша, устойчивост на пестициди и др.). „ОМИКС“ анализите играят роля не само за подобряването на качеството, консистенцията и производителността на реколтата, но и за развитието на селскостопански култури с подобрен хранителен състав. Освен това, системната биология помага за разбирането на взаимодействията между различните клонове на „ОМИКС“ анализите и предоставя връзката между гени и специфични характеристики.
В обработваемите райони почвата е по-податлива към загуба на структура, на органична материя, минерали и на ерозия. Прилагането на селскостопанска биотехнология спомага за осигуряване на постоянно снабдяване на земеделските земи с хранителни вещества, необходими за растежа на културите. Неразделна част от този подход е използването на биоторове. Това са препарати, съдържащи специализирани микробни инокуланти, които могат да фиксират, мобилизират, разтварят или разлагат източниците на хранителни вещества. Биоторовете обикновено се прилагат чрез семена или почва и подобряват усвояването на хранителни вещества от растенията. Широкото приложение на този подход обаче е възпрепятствано от флуктуациите в поведението на микробните инокуланти в полетата и културите. В резултат на това съществува неотложна необходимост от по-добро разбиране на механизмите, лежащи в основата на взаимозависимостта между почвените микробни съобщества и производителността на растенията гостоприемници. Последните геномни и екзо-метаболомни проучвания показват, че специфични ризосферни бактерии имат естествено предпочитание към определени ароматни органични киселини, отделяни от растенията. Този факт предполага, че растителната ексудация и усвояването на субстрати от микроорганизмите си взаимодействат и образуват специфични микробни съобщества. Освен това, изследване на поглъщането на фосфат от различни микроводорасли чрез прилагане на геномини и транскриптомни анализи разкри наличието на специфичен набор от Pi транспортери, имащи специфични модели на експресия по отношение на наличността на P в средата. Понастоящем „ОМИКС“ подходите се използват за изследване на сложни ризосферни интеркомуникации, което е от решаващо значение за разработването на нови биоторове, които да стимулират растежа на растенията и да осигуряват по-добра продуктивност и добиви.
В областта на хранителните биотехнологии, прилагането на транскриптомика и метаболомика показа, че Bacillus pumilus LZP02 стимулира растежа на оризовите корени чрез подобряване на метаболизма на въглехидратите и биосинтеза на фенилпропаноид. Освен това, прилагането на „„ОМИКС““ подходи при биоинженерство на нишесте осигурява по-добро разбиране на най-важните ензими, отговорни за неговата биосинтеза. Това улеснява предвиждането на това как фенотипините изяви, свързани с въглехидратния метаболизъм, могат да бъдат модифицирани и гарантира по-нататъшен напредък в изследователската област на биотехнологията на оризово нишесте. „„ОМИКС““ анализите помагат и за решаването на проблеми, свързани с качеството и проследимостта на храните, за защита на произхода на храната и откриване на биомаркери за потенциални проблеми с тяхната безопасност. Предварителното изследване на микробиома на виното е от голямо значение за винената индустрия, като помага за по-доброто разбиране на факторите, трансформиращи гроздето във вино, включително вкус и аромат. „„ОМИКС““ характеризирането на сложните взаимоотношения между тези микроорганизми, субстрата и околната среда, е от съществено значение за оформянето на производството на вино. И накрая, комбинирането на „ОМИКС“ технологиите с редактиране на генома на микроорганизми в храни може да се използва за генериране на подобрени пробиотични щамове, разработване на иновативни биотерапевтици и промяна на структурата на микробната общност в хранителните субстрати.
“ОМИКС” технологиите и COVID-19
Коронавирусната инфекция от 2019 година (COVID-19) се характеризира с тежък остър респираторен синдром коронавирус 2 [т.е. SARS-CoV-2, който се свързва с ACE2 рецептора в белите дробове и други органи]. Поради световното му разпространение беше обявена глобална пандемия и голяма част от световната икономика пострада значително. До април 2021 г. са потвърдени повече от 138 милиона случая и 2,5 милиона смъртни случаи в световен мащаб (https://www.worldometers.info/coronavirus/). Това доведе до предприемане на ефективни контрамерки за смекчаване на разпространението на пандемията.
Много усилия бяха вложени в ускоряването на разработването и производството на безопасни и ефективни ваксини срещу SARS-CoV-2. Предшестващите познания върху SARS и респираторния синдром от Близкия изток (MERS) улесниха таргетирането на протеина, изграждащ шиповете, като основен вирусен антиген (чрез ACE2 рецептора). Освен това, секвенирането на генома на SARS-CoV-2 през януари 2020 г. направи възможно ускоряването на разработването на следващо поколение иРНК ваксини и платформи за ваксини, които кодират антигена. Веднъж инжектирана в гостоприемник, иРНК, капсулирана в липидни наночастици, остава в цитоплазмата. Когато се използва ДНК, обвита в атенюиран аденовирусен вектор, тя навлиза в ядрото. Клетката гостоприемник превежда тези генетични материали в кода на протеина, изграждащ вирусния шип. Той се установява на повърхността на клетката и провокира адаптивен имунен отговор, медииран от Т клетки (например, CD4+ и CD8+) и В клетки (т.е. антитела). В проведените клинични изпитвания бе установено, че така получените ваксини са ефективни срещу SARS-CoV-2, което подчертава значението на геномиката за тази нова ера на разработване на ваксини.
От началото на избухването на SARS-CoV-2 пандемията беше създадена карта на взаимодействието на протеините и с помощта на различни протеомни подходи бяха разкрити специфични вирусни целеви мишени за лекарствени препарати. Чрез прилагане на протеомен анализ 26 от 29-те SARS-CoV-2 протеина бяха клонирани, маркирани с афинитетни багрила и експресирани в човешки клетки. Като резултат, бяха открити общо 66 човешки протеина, които могат да бъдат потенциални лекарствени мишени на 69 съединения. Две от тези фармакологични средства показват антивирусна активност. Освен това бяха извършени компютърни имунопротеомни анализи, в подкрепа на лабораторните изследвания, които позволиха оценка на специфичността на диагностичните продукти, прогноза за потенциални неблагоприятни ефекти на ваксините и намалиха използването на животински модели.
Наскоро беше разработен и метод, базиран на метаболомика, който е в състояние да разграничи пациентите с COVID-19 от здрави контроли чрез анализ на 10 плазмени метаболита. Освен това, данните от липидомното проучване предполагат, че обогатените на моносиалодихексозил ганглиозид екзозоми вероятно са част от патологичните процеси. Протеомните и метаболомните изследвания в серумите на пациенти с COVID-19 разкриха, че инфекцията със SARS-CoV-2 причинява метаболитна дисрегулация на макрофагиалния и липидния метаболизъм, дегранулация на тромбоцитите, нарушаване на системата на комплемента и масивна метаболитна супресия. Анализът на плазмените метаболомни сигнатури показа профил, подобен на този, описан при сепсис. Освен това, резултатите от транскриптомните анализи показват повишена регулация на гени, свързани с окислително фосфорилиране, както в периферните мононуклеарни левкоцити, така и в бронхоалвеоларната течност. Цялата тази информация предполага критична роля на митохондриалната активност по време на инфекция със SARS-CoV-2. Разбирането на клиничното представяне на COVID-19, както и на метаболомните, протеомните и генетичните профили, може да помогне за откриването на специфични диагностични, прогностични и предсказващи биомаркери, като гарантира развитието на по-успешна медицинска терапия. Освен това, диференцирането на метаболитни биомаркери на тежки спрямо леки болестни състояния в белите дробове по време на респираторни инфекции може да доведе до откриването на нови терапевтични средства, които модулират симптомите и тежестта на заболяването.
Изследвания в областта на нутриомиката
Измина повече от десетилетие, откакто идеята за нутригеномика беше въведена за първи път. Нутригеномиката, наричана още хранителна геномика, хранителна омика или нутри-омика, може да бъде определена като област на изследване на храните и храненето, използващо задълбочени анализи на молекули или други физически явления.
Като се има предвид сложността на човешкото тяло и различните му взаимодействия с храната, е възможно холистичните анализи на връзката храна-тяло да е важна предпоставка за по-добро разбиране на ефекта на хранителните компоненти. Основната идея е, че комбинацията от различни „ОМИКС“ платформи ще осигури по-задълбочено вникване във влиянието на хранителните компоненти и механизма на тяхното действие.
Геномика и хранене
Човешките гени имат различни варианти в популацията. Като се има предвид, че отговорът към храненето е мултигенен процес, не е изненадващо, че несвързаните индивиди могат да реагират по различен начин. Основната хипотеза, предложена през последните години, гласи, че генетичните вариации са в основата на вариациите в свързаните с храненето разстройства и риска от заболяване. Всъщност нутригенетиката се опитва да обясни как и до каква степен свързаните с храненето черти и разстройства се влияят от генетичните вариации. С други думи, ключовите въпроси на нутригенетиката са:
- Кои гени участват в определянето на дадена характеристика?
- Каква е функционалната идентичност на вариацията, по която хората се различават за тази характеристика?
- Как тези знания могат да бъдат използвани в полза на населението?
Обикновено изследователите дефинират различни „гени кандидати“ за дадена характеристика или разстройство и изследват тези гени за наличие на вариации. Това се описва като подход, основан на „хипотеза“, тъй като подборът на гените се основава на тяхната предполагаема функция. Например, гените, кодиращи липопротеини се използват като кандидати за затлъстяване, а гените, отговорни за инсулиновата сигнализация – като кандидати за диабет. Други привлекателни кандидати при хората са гените ортолози, лежащи в основата на животинските модели с менделова сегрегация на характеристика. Добре известен пример е db/db мишката. Това е модел за диабет, в който е идентифициран генът за лептиновия рецептор. След това човешкият хомолог беше тестван при хора с нарушен глюкозен толеранс. Идентифициран е един вариант (алел) на гена и е доказано, че той е свързан със значително по-висока честота на поява на диабет в сравнение с общата популация.
Други прилагани методи са свързани с изучаване на предпочитаната сегрегация на даден алел от родители към засегнато дете (тест за неравновесие на предаването) или към по-засегнати братя и сестри (анализ на двойки). Ако се установи, че даден ген е свързан с характеристиката, остава да се докаже дали самият асоцииран или свързан алел е рисков фактор, или може да се използва само като маркер за близка причинно-следствена вариация. Ако генетичната вариация е свързана с изменение на аминокиселини в протеина, може да се разработи функционален тест и алелните протеини могат да бъдат сравнени за тяхната ензимна активност, ДНК-свързващ афинитет и т.н.
Друг подход за търсене на рискови гени за определена характеристика или метаболитно нарушение е цялостното сканиране на генома. Откриват се стотици полиморфизми с произволно разпределение в генома, но с известно хромозомно местоположение. След това за всяко полиморфно място се идентифицира дали съществува връзка между алела и характеристиката. Използвайки този подход, рисковите локуси могат да бъдат идентифицирани за много нарушения, свързани с човешкото хранене, като затлъстяване и диабет.
След Втората световна война в много западни страни се наблюдава, че случаите на спина бифида постепенно намаляват. Предполага се, че подобрението на диетата е довело до този ефект. Започва голямо епидемиологично проучване. Получените резултати показват, че обогатяването на диетата с витамини е в състояние да предотврати появата на спина бифида при повече от 50% от хората. Установява се, че фолиевата киселина е тази важна субстанция и понастоящем в много страни приемането й преди зачеването се препоръчва като обща превантивна мярка. Едновременно с това става ясно, че по отношение на риска за дете със спина бифида, жените в популацията могат да бъдат разделени грубо на три групи: [а] не са изложени на риск дори при нисък прием на фолиева киселина, [b] са изложени на риск при диети с ниски концентрации на фолиева киселина, но появата на спина бифида може да бъде предотвратена от повишен прием на фолиева киселина и [c] изложени са на риск въпреки допълнителния прием на фолиева киселина. Предполага се генетично предразположение и кандидат-гените, избрани от метаболизма на фолата, са изследвани за генетични вариации. Това довежда до откриването на алелите 667C->T и 1298A->C в гена за метилентетрахидрофолат редуктаза (MTHFR) като рискови фактори. Въпреки това, тези рискови алели са открити до известна степен и в трите групи жени, което илюстрира, че генетичното тестване в контекста на персонализирана диета би било неадекватно. Освен това става ясно, че не целият относителен риск може да бъде обяснен с тези алели. Следователно търсенето на генетични вариации в други гени продължава и се очаква да бъдат намерени нови кандидат-гени.
Понастоящем чрез използване на генетични експерименти в различни популации и изследване на животински и in vitro моделни системи вече са идентифицирани няколко стотици гени, отговорни за специфични характеристики и нарушения, свързани с храненето. В резултат, изследванията на нутригеномиката и нутригенетиката трябва да доведат до цялостно разбиране на етиологията на тези характеристики и нарушения по отношение на взаимодействащите гени, хранителните компоненти и относителния риск, пренасян както от генетичните вариации, така и от диетата. Това комбинирано знание ще позволи генетичното профилиране на всеки индивид и по този начин ще оцени неговия/нейния риск от развитие на хранителни нарушения. Въз основа на този личен рисков профил от генетични фактори може да бъде предложена „персонализирана диета“, чрез която началото на разстройство може да бъде предотвратено или поне отложено. Вече някои компании предлагат генетични тестове за алели, за които е установено, че са свързани с определени характеристики. Например, алелът ApoE се тества като рисков фактор за сърдечно-съдови заболявания. Алел на гена на алкохол дехидрогеназата се използва за прогнозиране на потенциална чувствителност към алкохол и (зло)употреба. Важно е обаче да се отбележи, че може да се каже, че наличието на определен алел увеличава риска от разстройство със 100%, докато в абсолютни стойности рискът обикновено все още е много малък като увеличение от 0,001 на 0,002. Освен това, тестването само на един генетичен фактор може да даде непълна или дори погрешна представа за ситуацията. В днешно време нямаме представа за всички генетични фактори и как те взаимодействат. Докато се събере повече информация, съветите, базирани на просто тестване, вероятно трябва да останат прости и да звучат като „пийте по-малко алкохол“ или „яжте по-малко наситени мазнини“.
Транскриптомика и хранене
Транскриптомиката е най-широко използваният подход при изследванията на храните поради многото предимства на технологията на ДНК микрочиповете, включително изчерпателността на данните за експресията, установените протоколи и високата надеждност и възпроизводимост на данните. На базата на подобни изследвания беше установено, че съществува промяна в глобалната генна експресия в отговор на различни диетични промени, като хранителен дефицит, гладуване, преяждане и поглъщане на специфични хранителни компоненти. Като пример за такива изследвания е получаването на референтни данни с помощта на транскриптомен анализ на черен дроб на плъхове, лекувани със слаба рестрикция на калориите. При използването на експериментални животни, беше показано, че умерено намаляване на приема на храна или променен модел на прием могат да бъдат достатъчни за появата на значителни метаболитни промени. Ето защо е важно да се прави разлика между преките ефекти на хранителните компоненти и вторичните ефекти, причинени от промяната в хранителното поведение. Когато плъховете са били хранени с диета с 5 до 30% по-малко храна от тази, консумирана от група, хранена ad libitum в продължение на 1 седмица или 1 месец, се наблюдават рестрикционно-зависими промени в нивото на експресия на cyp4a14. Всъщност генът cyp4a14 се индуцира дори при много слабо ограничение на калориите. Тези данни предполагат, че генът може да се използва като биомаркер за благоприятните ефекти на храната върху енергийния метаболизъм.
Протеомика и хранене
Много изследвания на храните и храненето са проведени чрез използване на протеомни подходи. Ефектът от слабата рестрикция на калориите, описан по-горе, е изследван и чрез прилагане на протеомен анализ. След провеждане на протеомното сравняване на чернен дроб на плъхове, подложени на 30% хранителна рестрикция в сравнение с контролните, е установено наличието на девет протеина със значително повишена експресия и девет протеина с понижена такава. Десет процента рестрикция предизвика активиране на 9 протеина и репресия на 2. Интересно откритие беше повишаване на експресията на прохибитин, за който наскоро беше разкрито, че участва в процесите на забавяне на стареенето. Този резултат предполага, че прохибитинът може да се приложи като ефективен биомаркер за благоприятното въздействие на хранителните фактори. Въпреки че понастоящем прилагането на протеомни изследвания е много по-ограничено в сравнение с траскриптомните, изследването, описано тук, заедно с други протеомни резултати, показват, че този „ОМИКС „анализ е много обещаващ инструмент за откриване на различни биомаркери.
Метаболомика и хранене
В животинските организми съществуват около десет хиляди различни вида основни метаболити, докато броят на протеините се смята, че надвишава 100 000. Очаква се проучването на характеристиките на тези съединения да доведе до по-прецизен метаболомен анализ в сравнение с протеомния. Въпреки това, при анализа на метаболитите се наблюдават редица ограничения и обикновено се изисква използването на сложни техники и висококвалифициран персонал. Друго затруднение произтича от голямото изобилие на метаболити в клетката. Независимо от тези препятствия, метаболомиката е мощен инструмент в науката за храните и храненето.
Много изследвания показват, че чревния и серумен метаболизм се влияе от промяната в състава на чревния микробиом. Микробиомът на червата и неговото изменение в съответствие с приемната диетата са от съществено значение при използването на метаболомни изследвания и оценката на крайните ефекти. Сравняването на стерилни мишки, колонизирани с човешка бебешка микрофлора и конвенционални мишки, показа сложността на ковариацията на микробиом/метаболом, която може да се модифицира вследствие на приложената диета. В това проучване е изследван ефектът на чревния микробиом върху плазмените метаболити. Данните показват, че повече от 10% от плазмения метаболом е пряко зависим от микробиома. Някои примери за микробно зависими съединения в плазмата включват цинамова киселина, глицин конюгирани съединения, хипурова киселина и други плазмени метаболити. Чревният микробиом влияе пряко и върху способността на гостоприемника да метаболизира липидите, въглехидратите и протеините и може да осъществи и някои реакции на фаза II на детоксикация. Има също доказателства, че чревните микроорганизми използват нехранителни фитохимикали. Например, няколко изследвания показват, че нивата на три зависещи от микробиома метаболита и свързани с типа диета, холин, триметиламин N-оксид и бетаин, могат да предскажат риск от сърдечно-съдови заболявания при мишки.
Хранене и други „ОМИКС“ анализи
Много други „ОМИКС“ платформи също са на фокус в изследванията в областта на нутриомиката. Доказано е, че епигенетичната промяна може да бъде причинена от хранителната диета по време на феталното развитие и може да повлияе на предразположеността към заболявания, свързани с начина на живот в по-късен етап. Например, децата на майки, които са страдали от прекомерно хранене или недохранване по време на бременност, имат повишен риск от развитие на затлъстяване, диабет, хипертония, сърдечно-съдови заболявания и т.н. Много проучвания доказват участието на епигенетичните модификации в такава придобита чувствителност. Друга обещаваща цел на „ОМИКС“ подходите в науката за храните е свързана с РНК транскриптите, които не кодират протеини. МикроРНК (miRNA) е подтип на тези некодиращи РНКи. Прекурсорите на микроРНКте (pri-miRNA) са дълги продукти, които се разцепват, за да се получат зрели микроРНКи с дължина 22 нуклеотида. Зрелите микроРНКи регулират нивата на разграждане на иРНК, транслацията на иРНК и дори генната транскрипция. В човешките клетки са идентифицирани около 1000 микроРНКи и се предполага, че те регулират експресията на повече от половината от протеин-кодиращите гени. Имайки предвид натрупващите се данни, подкрепящи ключовата роля на микроРНК в развитието на заболявания и поддържането на здравето, информацията за състоянието на микроРНКте без съмнение е жизненоважна за разбирането на взаимодействието между хранителните компоненти и тялото. Понастоящем глобалният анализ на микроРНК може лесно да се извърши чрез използването на налични търговски продукти.
В ерата на постгеномиката с въвеждането на нови технологии и придобити знания, броят на „ОМИКС“ анализите и техните приложения в различни области бързо се увеличава. Такива нововъзникващи области – включително фармакогеномика, токсикогеномика, регуломика, сплайсеомика, метагеномика и екология – представят обещаващи решения за борба с глобалните предизвикателства в биомедицината, селското стопанство и околната среда.
Тест: ОР1-Ниво за напреднали

Литература
- Amer B, Baidoo EEK. 2021. Omics-Driven Biotechnology for Industrial Applications. Frontiers Bioeng. Biotech., 9, Art. 613307: 1-19.
- Azizipour N, Avazpour R, Rosenzweig DH, Sawan M, Ajji A. 2020. Evolution of Biochip Technology: A Review from Lab-on-a-Chip to Organ-on-a-Chip. Micromachines, 11: 599.
- Canzler S, · Schor J, · Busch W, et al. · 2020. Prospects and challenges of multi omics data integration in toxicology. Archives of Toxicology, 94:371–388.
- Horgan RP, Kenny LC. 2011. ‘Omic’ technologies: genomics, transcriptomics, proteomics and metabolomics. The Obstetrician & Gynaecologist, 13:189–195.
- Joseph P. 2017. Transcriptomics in toxicology. Food Chem Toxicol., 109(1): 650–662.
- Karahalil B. 2016. Overview of Systems Biology and Omics Technologies. Curr. Med. Chem., 23, 1-10.
- Karczewski KJ, Snyder MP. 2018. Integrative omics for health and disease. Nat Rev Genet., 19(5): 299–310.
- Kato H, Takahashi S, Saito K. 2011. Omics and Integrated Omics for the Promotion of Food and Nutrition Science. J. Trad. Complement. Medicine, 1 (1): 25-30.
- Kim DH, Kim YS, Son NI, Kang CK, Kim AR. 2017. Recent omics technologies and their emerging applications for personalized medicine. IET Syst. Biol.,11 (3): 87-98.
- Kodzius R, Gojobori T. 2016. Single-cell technologies in environmental omics. Gene 576: 701–707.
- Mariman ECM. 2006. Nutrigenomics and nutrigenetics: the ‘omics’ revolution in nutritional science. Biotechnol Appl Biochem., 44(3):119-28.
- Mousumi D, Prasad GBKS, Bisen PS. 2010. Omics technology. In: Molecular Diagnostics: Promises and Possibilities, Dordrech Heidelberg London, Springer, pp 11-31.
- Ryan EP, Heuberger AL, Broeckling CD, Borresen EC, Tillotson C, Prenni JE. 2013. Advances in Nutritional Metabolomics. Current Metabolomics, 1: 109-120.
- Sauer UG, Deferme L, Gribaldo L, et al. 2017. The challenge of the application of ‘omics technologies in chemicals risk assessment: Background and outlook. Regulatory Toxicology and Pharmacology, 91: S14 – S26
- Simões T, Novais SC, Natal-da-Luz T, et al. 2018. An integrative omics approach to unravel toxicity mechanisms of environmental chemicals: effects of a formulated herbicide. Scientific Reports 8:11376
- Titz B, Elamin A, Martin F, et al. 2014. Proteomics for systems toxicology. Computational and Structural Biotechnology Journal, 11: 73–90.
- Vlaanderen J, Moore LE, Smith MT, et al. 2010. Application of Omics Technologies in Occupational and Environmental Health Research; Current Status and Projections. Occup Environ Med., 67(2): 136–143.
- Yılmaz B, Yılmaz F. 2018. Lab-on-a-Chip Technology and Its Applications. In: Omics Technologies and Bio-engineering: Towards Improving Quality of Life, pp. 145, Elsevier Inc.
Биосензори § Биочипове за устойчиво бъдеще
ADVANCE L E V E L
Областта на синтетичната биология е в разцвет през последното десетилетие, оказвайки голямо влияние върху области като метаболитно инженерство, протеиново инженерство, дигитална биология и инженерство на целия геном.
Съдържание
Биосензори и биочип технологии: Принос към бъдещия устойчив живот
Областта на синтетичната биология е в разцвет през последното десетилетие, оказвайки голямо влияние върху области като метаболитно инженерство, протеиново инженерство, дигитална биология и инженерство на целия геном. В рамките на итеративните цикли на развитие „дизайн-изграждане-тест“ се е осъществила значителна част от иновациите в синтетичната биология. В областта на синтетичната биология напредъкът може да бъде свързан с иновации във всеки от процесите на „дизайн“, „изграждане“ и „тестване“. Например, имаше голям натиск за стандартизиране на елементите в рамките на синтетичната биология, като значително внимание се отделя на модулността и компонентите „включи и играй“. Тази модулация, заедно с ускорения напредък в системната биология, позволи на етапа „дизайн“ да стане по-малко отнемащ време и по-малко зависим от напредналите знания. През последните години разходите за ДНК секвениране и синтез също драстично намаляха, което позволи да се синтезират евтини големи конструкции. Във фазата „изграждане“ това улесни бързо подобрение, като помогна на изследователите да изследват по-голям процент от пространството на биологичния разтвор. И накрая, в рамките на „тестовата“ фаза на синтетичната биология, високопроизводителният скрининг също се превърна във фокусна точка. Увеличеният потенциал за „дизайн“ и „изграждане“ допринесе за повишено търсене на успех в оценката на изобилието от нови проекти. На свой ред това беше направено чрез включване на роботи и анализи с висока производителност в лабораторните условия, при които новите модели могат да бъдат оценени до ниво, което не е постижимо за човешки изследователи.
Биосензорите представляват новаторска развиваща се технология за високопроизводителен скрининг, която може да бъде лесно внедрена в практиката. Най-точно те са класифицирани като аналитичен инструмент, състоящ се от биологични компоненти, използвани за откриване и генериране на сигнал за наличието на целеви лиганд. Синтетичната биология е в челните редици на биосензорите, както като инструмент за високопроизводителен скрининг, така и като пряк резултат от развитието в областта на самата синтетична биология. В допълнение, поради несравнимата специфичност и чувствителност, която биологичните части предоставят по отношение на конвенционалните аналитични методи, биосензорите придобиха разширен интерес като алтернатива на традиционните анализи.
Дизайнът и изграждането на биосензори е мултидисциплинарно начинание и може да включва опит в области като протеиново инженерство, молекулярна биология, афинитетна химия, молекулярна динамика на нуклеинова киселина, материалознание и нанотехнологии. Биосензорите се свързват с целевия лиганд на най-простия им етап, претърпяват някакъв вид модификация и извеждат сигнал. Има голямо разнообразие от потенциални конфигурации във всички части на този процес. Таргетните лиганди варират от единични атоми като калций до цели протеини като тромбин през цялото време. Различни процеси като ензимна активност, флуоресценция, генериране на електрически ток и транскрипционна активност представляват изходни сигнали. Механизмите, които превръщат разпознаването на лиганди във функционални сигнали, са също толкова разнообразни.
В областта на анализа биосензорите представляват значителна стъпка напред. За да се отдалечи анализа от чисто физически или химически базирани рамки, започна интеграцията на биологичните компоненти в сензорната диагностика. Това позволи на аналитичните функции, които не са добре адаптирани към конвенционалните методи, да провеждат голямо разнообразие и специфичност на биологичните компоненти. Теоретичните и демонстрирани биосензорни приложения обхващат значителен кръг от човешкото общество и дейност. Приложенията за биосензори са групирани в три широки категории, в зависимост от скалата им за измерване.
- Групова диагностика: екологични, селскостопански и промишлени приложения
- Диагностика на точка на употреба: Медицински приложения и приложения за сигурност
- Едноклетъчна диагностика: Метаболитно инженерство и приложения за синтетична биология
Биосензори и биочипове: напредък в медицинската диагностика
Биосензорите се състоят от биокатализатор, който може да разпознае биологичен елемент и преобразувател, който може да превърне биокатализатора и комбинацията от биологични елементи в измерим параметър.
Биокатализаторът може да бъде биомолекула като ензими, ДНК, РНК, метаболити, клетки, олигонуклеотиди и др., както и електрохимични, калориметрични, оптични, акустични, пиезоелектрични преобразуватели и др. Биосензорите, използващи имобилизирани клетки, ензими и нуклеинови киселини, навлязоха в полето на диагностиката на заболявания през последните години. Като инженерни биосензори за диагностика на заболявания са приложени и нанобиосензори, използващи ултра малки размери и уникални свойства. Използването на биосензори може бързо да определи здравословното състояние, началото и прогресията на заболяването и с помощта на мултидисциплинарна комбинация от химия, медицинска наука и нанотехнологии може да помогне за подготовката на лечение. Устройствата са рентабилни, високо чуствителни, бързи, лесни за употреба и могат да бъдат произведени масово за човешка употреба. Най-развитите биосензори са за диагностика на три основни заболявания, като диабет, сърдечно-съдови заболявания и рак.
Такива биосензори, измислени от Cammann, са аналитични инструменти, които трансформират електрически сигнал в биологичен отговор. Биосензорите обикновено могат да бъдат много прецизни и трябва да бъдат рециклируеми и независими от физическите ограничения като рН, температура. Практическият подход при проектирането на биосензор изисква производство, имобилизация, трансдукционни устройства, които предлагат мултидисциплинарно изследователско инженерство както в химията, така и в биологията.
Въз основа на техният работен механизъм, диагностичните биосензори са разделени на четири големи групи:
- Биокаталитични биосензори на ензимна основа.
- Биоафинитетна група, т.е. наличие на антитяло, антиген и нуклеинова киселина.
- Микроорганизми, т.е. биосензори, съдържащи микроорганизми.
- Наносензори, т.е. активни сензори от наночастици, които обикновено повишават чувствителността и специфичността за ранно откриване на заболяване.
Тези различни видове биосензори помагат да се идентифицират със значителна специфичност нивата на хормоните, лекарствата, токсините, замърсителите, тежките метали, пестицидите и т.н.
Биосензорите са инструменти, които обикновено оценяват нивата на биологични маркери или всяка химическа реакция чрез създаване на сигнали, които са свързани предимно с концентрацията на аналита в химическата реакция. Обикновено такива биосензори помагат за наблюдение на болести, откриване на лекарства, откриване на замърсители, откриване на болести, причинени от бактерии и маркери, които обикновено показват болестни състояния, като телесни течности (слюнка, кръв, урина, пот и др.). Типичен биосензор е показан на Фигура 1.

Фигура 1 – Схематично изображение на биосензор
Типичен биосензор се състои от:
- Аналит: Вещество от интерес, като глюкоза за диабет, което трябва да се установи.
- Биорецептор: Биорецептор за ензими може да бъде молекула, която разпознава аналита.
- Преобразувател: Обикновено, събитие за биоразпознаване се преобразува в детектируем сигнал, известен като сигнализация.
- Електроника: В дисплейна форма, като обикновено обработва трансдуцирания сигнал.
- Дисплей: Обикновено дисплеят с течни кристали води до удобен за потребителя начин в комбинация с хардуер и софтуер за генериране на сигнал.
Има няколко приложения за биосензори, които са въведени в различни области, като медицинска наука, морски сектор, хранително-вкусовата промишленост и т.н., като тези биосензори често се програмират за подобрена чувствителност и линейност в сравнение с конвенционалните методи. Приложението на биосензори обаче нараства все повече в областта на медицинската наука.
Биосензори за глюкоза при диабетно лечение
Мониторингът на кръвната захар се превърна в ценен инструмент при лечението на диабет и дневните нива на кръвната захар обикновено се поддържат от консултации с клиницисти, които са разработили серия сензори за кръвна захар. Захарният диабет е най-голямото преобладаващо ендокринно разстройство на въглехидратния метаболизъм с по-голяма заболеваемост и смъртност в развиващите се страни. При пациенти с диабет са обичайни многобройни тестове за изследване и мониторинг на диабетните маркери. Ключовите критерии за диагностика на диабета са нивото на кръвната захар, което включва самоконтрол на нивата на глюкоза при пациенти с диабет. Проучванията показват, че микроваскуларните (нефропатия, невропатия и ретинопатия) и макросъдовите (коронарна артериална болест и инсулт) усложнения могат да бъдат подобрени чрез контролиране на нивото на кръвната захар в нормалните граници. Кръвната захар обикновено се наблюдава при здрави индивиди в диапазона от 4,9-6,9 mM и може да се увеличи при пациенти с диабет до 40 mM след прием на глюкоза. Въпреки че на пазара се предлагат различни видове глюкозни сензори, третото поколение глюкозни биосензори е показано на Фигура 2 като пример.

Фигура 2 – Трето поколение глюкозен биосензор
Откриване на сърдечно-съдови заболявания с помощта на биосензори
Броят на смъртните случаи, причинени в световен мащаб от сърдечно-съдови заболявания (ССЗ), е значителен и повече хора умират от ССЗ, отколкото от всяко друго заболяване. До 2015 г. около 17,7 милиона души са починали от ССЗ, което представлява общо 31 % от всички смъртни случаи в световен мащаб. 7,4 милиона от тях се дължат на коронарна болест на сърцето, а 6,7 милиона се дължат на инсулт. Хората с ССЗ се нуждаят от по-ранно откриване и лечение, за да се ограничат негативните последици чрез прилагане на подходящи лекарства и терапии. Настоящата стратегия за откриване на ССЗ разчита на традиционния метод, който обикновено се основава на тестване, което може да отнеме много часове или дори дни. СЗО определя тези диагностични критерии, при които пациентите трябва да следват поне едно от условията, като промени в диагностичната електрокардиограма (ЕКГ), повишаване на биохимичните маркери в кръвните им проби и характерна болка в гърдите. ЕКГ е важен параметър за управление на терапията, но ЕКГ е лош диагностичен тест в случай на ССЗ, тъй като половината от пациентите със ССЗ имат нормална кардиограма, което затруднява диагностицирането на това медицинско състояние. Биосензорът ще помогне за бърза диагностика, като ще осигури отлична здравна грижа и ще намали времето за получаване на резултатите, което е огромен стрес за пациентите.
Биосензор за откриване на рак
Ракът е едно от най-смъртоносните заболявания и наскоро няколко изследователи са разработили биосензори за ранно откриване на рак. Повечето видове рак обикновено се диагностицират чрез ЯМР, ултразвук или биопсия, които разчитат на физическите свойства и наличието на тумора и или се използват инвазивни инструменти. Често вариации в генните последователности, т.е. мутациите, причиняват формирането на ракови образования и тяхната ранна диагностика преди болестта да прогресира е от изключително значение. Ранното откриване на рак, чрез биосензорна платформа за откриване на ранни стадии на рак, прави лечението по-бързо и по-успешно. Много експерти предполагат, че в случай на рак може да бъде възможно ранно откриване, тъй като аномалии в химичния и генетичен състав могат да бъдат идентифицирани много преди началото на болестта.
Неконтролиран и нередовен клетъчен растеж, за който обикновено се смята, че е рак, възниква поради натрупването на уникални генетични мутации и епигенетични дефекти. Доказано е, че туморните клетки са устойчиви на апоптоза и защитните механизми на организма срещу неконтролирания растеж. Ако прогресира и започне да се разпостранява до други телесни органи и системи, т.е. стадий на метастазиране, ракът става нелечим. Онкогенната стимулация и намаляването на функцията на туморните супресорни гени (TSGs) са двата най-важни механизма на туморогенеза. Поради мутация или репликация на нормален ген (прото-онкоген), се извършва активиране на онкогена, който играе ключови роли, включително контрол на клетъчния растеж, пролиферация и/или диференциация. Такава генетична мутация води до производство на излишно количество от дадения генен продукт, което от своя страна нарушава регулацията на клетъчното делене, клетъчния растеж и установяването на тумора.
Рецепторите на растежния фактор се считат за обещаващи биомаркери за много онкогени. При ~ 33 % от всички видове рак на гърдата рецепторът на човешкия епидермален растежен фактор Her-2 се засилва, а ракът със засилен Her-2 изглежда се развива и по-бързо. Следователно осведомеността за статуса на Her-2 е от съществено значение за завършване на възможния курс на лечение. Понастоящем за пациенти с този тип усилена генна експресия се използва типична адювантна терапия, рекомбинантно хуманизирано моноклонално антитяло, насочено към Her-2, като директен подход за лечение за рак на гърдата.
Туморно-супресорните гени (TSGs) са свързани с контрола на недостатъчния клетъчен растеж и пролиферация чрез минимизиране или предотвратяване на деленето на клетките. Ретинобластомният протеин (Rb), BRCA1/2 и р53 са три от най-добре проучените TSGs при рак. Rb е главен регулатор на клетъчното делене и Rb мутацията играе значителна роля при различни видове рак. Най-честите причини за инактивиране на Rb1 гена са точкови мутации и делеции. BRCA1 е ензим за възстановяване на ДНК, който е свързан с коригиращите функции на ново реплицираната ДНК и търсенето на всякакви мутации. Докато клетката се раздели, ензимите за възстановяване на ДНК обикновено работят за изрязване на грешки при репликацията. BRCA1 генните мутации са отговорни за 50% от наследствените ракови заболявания на гърдата и 80-90% за наследствените ракови заболявания на гърдата и яйчниците.
И накрая, основен регулатор на апоптоза или програмирана клетъчна смърт е протеинът р53. В мозъка, гърдата, дебелото черво, белите дробове, хепатоцелуларните карциноми и левкемията се откриват мутации на р53. Друго значително участие в загубата на р53 е, че това води до резистентност към химиотерапевтичните лекарства. Подобряването на биосензори, които могат да открият съществуването на мутации в р53, Rb и BRCA1, е силно оправдано и може да оцени възможността за поява на рак с подробна прогноза и режими на лечение.
Биочип в диагностиката
ДНК биочипът отваря нова генетично базирана област на диагностика. Начинът, по който медицинската професия извършва кръвни тестове, може да бъде революционизиран от новоразработените ДНК биочипове. Те са почти незабавни, вместо пациентът да трябва да чака няколко дни за резултати от лаборатория, и са с размер на кибритена кутия. И без да се жертва точността, той изисква по-малко кръв. В допълнение към спестяването на време, ДНК биочипът намалява и необходимостта от радиоактивно белязане. За техници и лаборанти, които боравят с проби и извършват тестове, това значително намалява разходите и негативните ефекти върху здравето. Той също така намалява разходите за изхвърляне, тъй като според строгите правила трябва да се борави с химически маркирана кръв.
Биосензорът трябва да бъде силно чувствителен и да може да прави разлика между например бактерии, вируси или други химични или биологични видове, за да бъде полезен за откриване на съединения в реална проба. Според Vo-Dinh, който поясни, че биочипът имитира сложните възможности за разпознаване на жива система, ДНК биочиповете го правят. ДНК биочипът е биосензор на базата на генна сонда, за разлика от други биосензори, базирани на ензимни и антитела. Биосензорите на базата на генни сонди осигуряват изключителна селективност и чувствителност, което ги прави ценни инструменти за диагностициране на генетични заболявания и инфекциозни видове.
Биочип за епидемия от туберкулоза
Разработването на нови биочип технологии от руски и американски учени представлява реална възможност за спиране на глобалното възраждане на туберкулозата. Създадена от Националната лаборатория Аргон на Министерството на енергетиката на САЩ и Института по молекулярна биология на Руската академия на науките W. A. Englehardt (Москва), тази технология има за цел да помогне в борбата с настоящото разнообразие от резистентни на лекарства щамове на болестта.
Световната здравна организация съобщава, че туберкулозата убива повече млади хора и възрастни, включително от СПИН и малария, взети заедно, отколкото всяко друго инфекциозно заболяване. Най-голямото предизвикателство на продължаващата епидемия от туберкулоза е, че болестта може да бъде причинена от няколко различни бактериални вида и всеки от тях е устойчив на различни лекарствени препарата. Критичният елемент при контролирането на заболяването е да се определи щамът, който засяга даден пациент и да се определи най-добрият антибиотик за борба с този щам. За да прави разлика между многобройни туберкулозни щамове, Аргон възнамерява да използва биочип технологията в изследванията. Първоначално ще бъдат проведени тестове върху сегменти от генетичен материал, отстранени от туберкулозни бактерии. Биочиповете са предназначени за едновременно провеждане на редица биохимични реакции и е установено, че се представят задоволително при лабораторни тестове. Тъй като откриването на специфични щамове на туберкулоза отнема седмици или месеци, на пациентите често се предписват няколко антибиотика едновременно.
Биочип за рак
Технологията на биосензорния чип също осигурява бърз и лесен достъп до решаваща информация за увреждащото съединение на ДНК, причиняващо рак, придвижвайки изследователите една крачка по-близо в борбата срещу него. За разлика от традиционните методи за биодетекция, лазерно базиран метод с висока разделителна способност и ниска температура на флуоресценция предлага прецизен пръстов отпечатък на молекулата. Възможно е неговата лекота на използване да насърчи подмяната на инвазивните ендоскопски процедури и да помогне за ранно откриване на рак на дебелото черво.
Биосензори и биочипове, прилагани в храните и селското стопанство
Настоящото производство на храни е изправено пред огромни предизвикателства от нарастващото човешко население, поддържането на чисти ресурси и качеството на храните и опазването на околната среда и климата. Устойчивостта на храните е основно съвместно усилие, което води до развитието на технологии, финансирани както от правителства, така и от компании. Подкрепени са няколко опита за преодоляване на предизвикателствата и подобряване на двигателите в производството на храни. Чрез своите приложения биосензорите и биосензорните технологии се използват широко за решаване на основните предизвикателства на производството на храни и тяхната устойчивост. В резултат на това нараства нуждата от биосензорна технология в областта на устойчивостта на храните. Една такава технологична система, съчетаваща няколко технологии е микрофлуидиката. Наноматериалите, с тяхната биосензорна технология, са известни като най-иновативният инструмент, подпомагащи световното население при справяне със здравните, енергийните и екологичните проблеми. Необходимостта от технология за точково обслужване (POC) в тази област се фокусира върху аналитични инструменти, които са бързи, прости, прецизни, компактни и евтини.
За нашето съществуване и живот храната с нейната производствена индустрия е от съществено значение, както и нейната устойчивост има важна роля за непрекъснатия човешки растеж на планетата. Настоящото производство на храни е изправено пред огромни трудности от увеличаването на човешкото население, поддържането на чисти ресурси и качество на храните, както и опазването на околната среда и климата. Някои от тези въпроси произтичат от самото производство на храни, а други произтичат от други индустрии, свързани с производството на храни. Оплакванията от храни например нанасят сериозни щети на доверието и престижа на различните марки, с прогноза от 15 милиона долара на инцидент през последните няколко години. 48 милиона случаи на заболявания са отговорни за 3000 смъртни случая годишно поради патогени, пренасяни с храна.
Безопасността на храните е до голяма степен съвместни усилия, произтичащи както от правителствата, така и от компаниите в технологичното развитие. За да поставят нови предизвикателства по въпросите за безопасността на храните, информационните технологии като „blockchain“ технологията могат да ускорят комуникацията между институциите, отговорни за качеството на храните, медиите и потребителите. Пет предизвикателства могат да бъдат обобщени като основни за устойчивостта на производството на храни: предизвикателство за производството на безопасни и сигурни храни; предизвикателство за качество на разнообразието и качество на храните; икономическо предизвикателство във водещата хранителна система, включително нейната опаковка и верига на доставки; екологично предизвикателство, включително преработката на хранителни отпадъци и инженерно предизвикателство при създаването и генерирането на нова храна.
По принцип биосензорът е аналитичен инструмент, използван за измерване на интересуваща ни молекула в дадена проба (мишена). Като цяло се използва уникален за мишената фактор за биоразпознаване (аптамер, антитяло, ензим и др.). Физиохимичен или биологичен сигнал се предизвиква от събитията на молекулно разпознаване между разпознаващия елемент и целевото съединение, което се трансформира в измеримо количество от преобразувателя. Сигналите се показват или в оптичен (колориметричен, флуоресцентен, хемилуминесцентен и плазмонен повърхностен резонанс), електрически (волтаметрия, импеданс и капацитет) или в друг избран формат (Фигура 3).

Фигура 3 – Класификация на биосензорите въз основа на преобразуватели и елементи за биоразпознаване, използвани при анализа на храните
Като една от основните цели на анализа на храните, безопасността на храните е основен здравен проблем както за животните, така и при човека. Напредъкът на аналитичната технология за безопасност на храните означава, че тя процъфтява в съответствие с нарастващия интерес и акцент върху проблемите на безопасността на доставките на храни. В анализа на безопасността на храните традиционните подходи са трудоемки, отнемат много време и се нуждаят от обучени техници. Прилагането на микрофлуиди в анализа на безопасността на храните дава нова наскока за това как ефективно и бързо да се открият хранителни токсини, алергени, патогени, опасни вещества, тежки метали и други замърсители. Характеристиките на микрофлуидиката, като например способността за миниатюризиране, компактните и редуцируеми количества проби и реактиви, го правят перфектна технология за развитие на устойчивостта на храните. Сложното приготвяне на хранителна матрица и трудните етапи на производство са настоящите предизвикателства при прилагането на микрофлуиди към определяне устойчивостта на храните. Тези предизвикателства могат да бъдат решени чрез използване на физични свойства в зависимост от конкретни целеви цели, проектиране на сложни микрофлуидни платформи за анализ на реални храни и включване в микрофлуидни системи на биомолекули като хранителни протеини и ДНК.
Наноматериали в биосензорната технология
Със своята биосензорна технология наноматериалите са най-обещаващият инструмент за справяне със здравните, енергийните и екологичните проблеми, свързани с населението по света. Частици, по-малки от 100 nm, са известни като наноматериали. Тези наноматериали са биокомпозитни полимери на базата на метал, метален оксид и въглерод и са установени различни видове наночастици, като магнитно желязо, алуминий, злато, сребро, мед, силициев диоксид, цинк, цинков оксид, цериев оксид и наночастици от титанов диоксид и единични/многостенни въглеродни нанотръби (CNTs). Нанотехнологиите и тяхното селскостопанско приложение бяха значително разширени в различни области. Тези области включват производство на храни, растителна защита, откриване на патогени и токсини, пречистване на води, пакетиране на храни, изхвърляне на отпадъчни води и възстановяване на околната среда. Подобряването на продуктивността и производителността на приложенията е приоритет на тези селскостопански области.
В областта на безопасността и защитата на храните са разработени биосензорни технологии за откриване на хранителни вещества, патогени и токсини, както е изброено по-долу.
Откриване на хранителни вещества
Мерките за защита на храните могат да бъдат разделени на две категории: загуба след прибиране на реколтата и биосигурност на храните. Биосигурността на храните означава замърсяване и разграждане на храните, което е разгледано в по-късните раздели чрез екологична, политическа, несправедлива икономическа печалба, война или отмъщение. Загубата след прибиране на реколтата, от друга страна, предполага хранителните вещества и ядивните условия в храните, които трябва да се поддържат между периода на прибиране на реколтата и момента на консумация. Тъй като времето се различава от минути до години, за поддържане и намаляване на загубите, технологиите, фокусирани върху намаляване на загубите след прибиране на реколтата, са важни.
За да се поддържа качеството на храната и да се избегнат загубите след прибиране на реколтата, могат да се използват нови технологии като биосензорите. Такива са разработени например за откриване и анализ на количества подсладители в храни, като могат да се използват за откриване както на естествени, така и на изкуствени подсладители. Подсладителите се използват широко в производството и преработката на храни, но наскоро бяха идентифицирани при хората като причиняващи здравословни проблеми. Разработен е многоканален биосензор за използване на електро-физиологично наблюдение от вкусовия епител за откриване и анализ както на естествени, така и на изкуствени подсладители. За откриване на дългосрочни сигнали съответно от захароза, глюкоза, цикламат и захарин, сигналите се изследват чрез пространствено-времеви техники. Биосензорът може да прави разлика между различни концентрации с дозозависими повишени реакции на вкусовия епител от различни подсладители. Той също така може да прави разлика между два естествени подсладителя: захароза и глюкоза, с два сигнала. За глюкозата обхватът на откриване е 50-150 mM, а за захарозата 5-15 mM.
Откриване на патогени
Поради намаленият си формат, биосензори, предназначени за откриване на патогени, като бактерии (Таблица 1) и гъби (Таблица 2), бяха разработени преди повече от две десетилетия – едно устройство за справяне с множество проблеми и откриване на сигнал от няколко панела. Мотивът на лиганда е решаващ елемент в дизайна на биосензора за откриване на патогени, тъй като определя чувствителността и ефективността на устройството. Целта е да се създаде бърза, специфична и чувствителна платформа за откриване в проби от храни за наличието или отсъствието на патогени. Открито е, че няма идеален лиганд, а различните лиганди имат различни предимства. Комбинацията от биорецептори за откриване на голямо разнообразие от микроорганизми в различни проби поставя настоящи предизвикателства при разработването на биосензори за патогени; нов дизайн на синтетичен лиганд като аптамери, малки молекули и пептиди, както и включването на различни лиганди в преносимо устройство за постигане на бърза, ефективна и евтина детекция.
Таблица 1. Условия за броя на бактериите, отглеждани в млякото
| Температура °C | 24 ч | 48 ч | 96 ч | 168 ч |
|---|---|---|---|---|
| 0 | 2100 | 2100 | 1850 | 1400 |
| 4 | 2500 | 3600 | 218,000 | 4,200,000 |
| 8 | 3100 | 12,000 | 1,480,000 | |
| 10 | 11,600 | 540,000 | ||
| 15 | 180,000 | 28,000,000 | ||
| 30 | 1,400,000,000 |
Таблица 2. Изисквания за температура и активност на водата за растежа на гъбичките
| Видове | Минимум | Оптимум | Максикум | Минимум | Оптимум |
|---|---|---|---|---|---|
| Aspergillus ruber | 5 | 24 | 38 | 0.72 | 0.93 |
| A. amstelodami | 10 | 30 | 42 | 0.70 | 0.94 |
| A. flavus | 12 | 35 | 45 | 0.80 | 0.99 |
| A. fuminatus | 12 | 40 | 52 | 0.83 | 0.99 |
| A. niger | 10 | 35 | 45 | 0.77 | 0.99 |
| Penicillium martensii | 5 | 24 | 32 | 0.90 | 0.99 |
Откриване на токсини
Основно направление в развитието на безопасността на храните са електрохимичните биосензори за бързо откриване и оценка на хранителни токсини. Разработени са множество платформи, които позволяват на персонализирани и индивидуализирани устройства да отговарят на определени екологични и организационни изисквания и да достигнат нивата на лимитите на детекция от nM до fM. Например, за да се насърчат уникалните профили на свързване, биорецепторните масиви се насочват към отделни електроди, функционализирани с различни биорецептори. В допълнение към електрохимичното биологично изследване, откриването на токсини и химикали в производството на храни е постигнато и с друг тип биосензори като оптично и пиезоелектрично измерване (Фигура 4). За да се установят токсините, флуоресцентни наночастици се свързват с храните, което може да се осъществи на повърхността и вътре в храните.

Фигура 4 – Преобладаващи замърсители на храните и целевите аналити в хранително-вкусовата промишленост [56] Екстракцията на токсини от сложни хранителни проби е една от основните пречки при създаването на напълно автоматизиран детектор на токсини. За да се оценят автоматично техните вредни нива от проби от храни и вода, се очаква потенциалните системи да извличат, обработват и измерват токсините. При идентифицирането, дискриминирането и количественото определяне на химичните токсини в хранителните матрици, се съчетават сложни стратегии за разделяне с повърхностно усилено раманово разсейване (SERS). Освен това, въпреки че обикновено са в по-ниски количества, химическите замърсители от преработката на храни могат да бъдат предизвикателство. По-ниската стабилност, селективност и чувствителност са друго предизвикателство при откриването на токсини в храните, където молекулярно отпечатаните полимери (MIPs) могат да бъдат решение за осигуряване на стабилни и евтини алтернативи.
Тежките метали като Ag+, As3+, Cd2+, Hg2+, Pb2+ и Zn2+ са известни като химически замърсители, които образуват стабилни окислени състояния и пречат на метаболитните пътища, което води до здравословни проблеми. Биосензорите на базата на аптамер и ДНК могат да откриват тежки метали както на наноразмерни, така и на много мащабни нива, които са подходящи за скрининг и мониторинг на безопасността на храните. За да се открие арсенат в храната, биосензорът за откриване на тежки метали се основава на генетично модифицирани бактериални клетки и зелен, флуоресцентен усилвател на сигнал. С обхват на откриване от 5-140 μg/L арсен, неговото установяване продължава само един час и може да бъде интегрирано с оптична изходна мощност. Други технологии за биосензор, като аптамери, наночастици и графенови електроди, са успешно приложени за идентифициране и оценка на арсен, с потенциал да бъдат произведени като бързи, прости, лесни за използване и евтини устройства.
Нанотехнологиите са адаптирани към две отделни области на селскостопанските хранителни пестициди: като пестициден вектор за доставка на пестициди за управление на пестициди и като детектор за следи от пестициди. В първото направление наночастиците са в състояние бавно да насочват пестицидите към инсектите-вредители, което помага за предотвратяване на замърсяването на подземните води и горния слой на почвата, намаляване на нивата на пестициди и подобряване на ефективността. Във втората област, био- или биомиметично базирани нанотехнологии, като антитела, ензими, аптамери и MIP-подобни макромолекули, подобряват стабилността, селективността, чувствителността и скоростта на откриване на остатъчни концентрации от тях. Освен това, бактериалните, гъбните, водорасловите и клетките на бозайници са биосензори на клетъчна основа, използвани при откриването на пестициди и хербициди, помагайки за създаването на бързи, надеждни и рентабилни инструменти в реално време за процедури за обеззаразяване и превантивни мерки при инциденти.
Канцерогените, миризмите и морските замърсители са други токсини, които са значителни при производството на храни. Канцерогените са сложна група от токсини в следови концентрации, като пестициди, тежки метали, микотоксини и акриламид, при които трудността при идентифицирането е предизвикателство. Прилагането на аптамери, нанотехнологии и биочувствителни материали са оптимистични подходи с обещаваща бъдеща употреба. Чувствителни и разтворими молекули, ефективни при откриване на миризми, са свързващи миризмата протеини. В тази насока е разработен наносензор, съчетаващ локализиран повърхностен плазмонен резонанс (SPR) и малки свързващи аромати протеини от пчели, чйито обхватът е 10 nM – 1 mM. За наблюдение и запазване на стабилна среда за морските хранителни системи се налага откриване и на морски замърсители. Поради тяхната висока чувствителност, миниатюрни размери, безжична комуникация и малки мрежи, биосензорите могат да бъдат приложени към безопасността на морските храни, за да бъдат утвърдени като усъвършенствани инструменти за анализ и мониторинг.
Друг комплект за разработване на биосензори за безопасност на храните се фокусира върху откриването на генетично модифицирани организми (ГМО) в хранителните продукти. От 90-те години на миналият век ГМО във всички области на селскостопанските продукти се считат за биотехнологична революция. Понастоящем, повече от 45 % от соята в света, 40 % от царевицата и 50 % от памука са ГМ продукти и ГМ се използва и за фуражи за добитъка. Последните изследвания обаче показват, че ГМО продуктите могат да повлияят на човешките и животинските органи чрез стомашно-чревни проблеми, резистентност към антибиотици, алергенност, разновидност от разграждане на селскостопанските продукти и нежелан приток на гени към други видове. Биосензорите са предназначени за измерване на ГМО в храни и фуражи, използвайки изотермична амплификация на ДНК и бързо откриване на сигнали за идентифициране на гени за ГМ. Откриването на неидентифицирани ДНК гени, които могат да бъдат разрешени чрез високопроизводителна технология като комбинацията от биочувствителност и масиви, и разработването на бази данни за гени с ГМО са ключовите предизвикателства при детекцията на ГМО.
Биосензори и биочипове за мониторинг на околната среда
Поради силната връзка между замърсяването на околната среда и човешкото здраве/социално-икономическия прогрес, мониторингът на околната среда се превърна в един от приоритетите в европейски и световен мащаб. Биосензорите обикновено се използват като икономически ефективни, бързи, in situ и аналитични техники в реално време в тази област. Неотдавнашното развитие на биосензори с нови трансдукционни материали, получени от нанотехнологиите и за мултиплексно откриване на замърсители, включващи мултидисциплинарни експерти, обяснява необходимостта от компактни, бързи и интелигентни биосензорни устройства. Съществуват няколко скорошни разработки в мониторинга на замърсителите на въздуха, водата и почвата чрез биосензори при реални условия, които установяват наличието на пестициди, силно токсични компоненти и малки органични молекули, включително токсини и химикали, разрушаващи ендокринната система.
Биосензорите, използвани при мониторинга на околната среда, могат да бъдат категоризирани като оптични (включително оптични влакна и повърхностни плазмонни резонансни биосензори), електрохимични (включително амперометрични и импедансни биосензори) и пиезоелектрични (включително биосензори с кварцов кристал за микробаланс) въз основа на тяхната трансдукция или като имуносензори, аптасензори, геносензори и ензимни биосензори въз основа на техните разпознаващи елементи, съответно когато се използват антитела, аптамери, нуклеинови киселини и ензими. По-голямата част от биосензорите в мониторинга на околната среда са признати като имуносензори и ензимни биосензори, но развитието на аптасензорите напоследък се увеличава поради полезните характеристики на аптамерите, като лекота на модификация, термична стабилност, in vitro синтез и способността да се проектира тяхната структура, да се диференцират мишени с различни функционални групи и да се рехибридизира.
Проучването на дизайна на биосензори за мониторинг на органични замърсители, потенциално токсични елементи и патогени в околната среда ще доведе до устойчиво развитие на цивилизацията поради разрешаването на проблемите със замърсяването на околната среда, рефлектиращи върху човешкото здраве. Различните хроматографски техники (като газова хроматография и високоефективна течна хроматография, комбинирани с капилярна електрофореза или масспектрометрия) са конвенционални аналитични методи, използвани за мониторинг на замърсителите в околната среда, но изискват скъпи реактиви, отнемат време за предварителна обработка на пробите и скъпо оборудване. Следователно, за мониторинг на замърсителите, отговорни за неблагоприятното въздействие върху местообитанията и човешкото здраве, са отчаяно необходими по-чувствителни, рентабилни, бързи, лесни за работа и компактни биосензорни устройства за преодоляване на увеличаването на екологичните проблеми. В случай на случайно освобождаване на пестициди или остро отравяне, например, обичайните методи не са подходящи за измервания in situ, където се изисква бързо, миниатюризирано и преносимо оборудване като биосензори за мониторинг на околната среда. В тази връзка, ролята на нанотехнологиите в създаването на бързи и интелигентни биосензорни устройства е от решаващо значение за успеха на детекцията на замърсители на околната среда. Най-новите биосензори включват наноматериали и нови нанокомпозити в техните системи, които са полезни за подобряване на аналитичните показатели, като чувствителност и лимити на детекция.
За детекция и мониторинг на различни замърсители на околната среда, биосензори, включително имуносензори, аптасензори, геносензори и ензимни биосензори са документирани, като се използват антитела, аптамери, нуклеинови киселини и ензими като разпознаващи елементи.
Пестициди
Пестицидите са сред най-значимите екологични замърсители поради голямото им присъствие в околната среда. Органофосфорните инсектициди, например, обикновено се използват в селското стопанство и представляват група пестициди, които поради високата си токсичност са от огромно значение за околната среда. Следователно са необходими лесни, отзивчиви и миниатюрни методологии in situ, а именно биосензори, като аналитични стратегии за тяхното откриване и наблюдение, без да е необходимо цялостно предварително третиране на пробата.
Амперометрични ензимни (ацетилхолинестеразни) биосензори за еднократна употреба бяха предложени за детекция на фосфорорганични инсектициди, използвайки параоксон като шаблонен аналит, прилагащ самосглобен монослой от цистеамин върху златно-отпечатани електроди. Биосензорите за еднократна употреба показват линеен спектър до 40 ppb с лимит на детекция 2 ppb и чувствителност 113 μA mM cm-2. Използвайки самосглобяемия монослой, добрият аналитичен резултат може да се дължи на силно ориентираната ензимна имобилизация. Съобщават се възпроизводимост от 97 ± 5 % (n = 3) след тестване в проби от речна вода, добавени с 10 ppb параоксон, което показва ефективността на такива ензимни биосензори. Освен това, използването на електроди за ситопечат за еднократна употреба води до елиминирането на отнемащи време методи като реактивиране на имобилизирани ензими, използващи, например, разтвор на обидоксим и пралидоксим йодид (PAM) или използването на възобновяема ензимна мембрана, необходима за повторното прилагане на биосензора.
Наночастици на основата на иридиев оксид са използвани в еднократния ензимен биосензор с тирозиназа на базата на евтини ситопечатни въглеродни електроди за детекция на хлорпирифос в проби от речна вода. Съобщава се за линеен биосензорен отговор (0,01-0,1 μM) и е отчетен нисък лимит на детекция (3 nM), което може да се дължи на високата проводимост на наночастиците на иридиевия оксид и ефективността на тирозиназата. Тестовете за възпроизводимост бяха проведени в проби от речна вода с добавяне на 0.1 μM хлорпирифос и бяха получени възпроизводимост от 90 ± 9.6 % с остатъчно стандартно отклонение (RSD) по-малко от 10 % (n = 3), за да се демонстрира приложимостта на биосензора.
Ацетамиприд е детектиран чрез колориметрични аптасензори във водни проби и чрез импедиметрични аптасензори в реални проби от околната среда, като проби от прясна повърхностна почва. Линейният диапазон от 75 nM до 7.5 μM и лимит на детекция от 5 nM бяха наблюдавани с колориметричния аптасензор, докато по-широк линеен диапазон (50 fM до 10 μM) и по-нисък лимит на детекция (17 fM) бяха наблюдавани с импедиметричния аптасензор. В този биосензор са използвани златни наночастици, многостенни въглеродни нанотръби (MWCNT) и редуцирани наноленти от графен оксид като композит за поддържане на повърхността на електрода ацетамиприд аптамер, който може да бъде отговорен за по-висок електронен пренос и подобрени аналитични показатели на биосензора. Подобен лимит на детекция (33 fM) се наблюдава от аптасензор на базата на сребърни наночастици, закотвени върху легиран с азот нанокомпозитен графенов оксид, конструиран за откриване на ацетамиприд в проби от отпадъчни води.
Патогени
Наличието на патогени в околната среда и особено във водите може да представлява сериозен риск за човешкото здраве и наскоро бяха предложени някои биосензори за мониторинг на околната среда. Например, за детекция на метаболитно активна Legionella pneumophila в комплексни водни проби от околната среда са предложени бързи и прецизни оптични биосензори, базирани на повърхностен плазмонен резонанс. В едно от проучванията принципът на детекция се основава на идентифицирането на бактериална РНК чрез имобилизираната РНК детекторна сонда върху златната повърхност на биочипа. За усилване на сигнала бяха използвани квантови точки, конюгирани със стрептавидин и периодът на детекция беше приблизително три часа, което показва жизнеспособността на биосензорното устройство за успешно откриване на бактерии в диапазона 104-108 CFU mL-1.
Потенциално токсични елементи
Замърсяването с тежки метали и съответните йони на естествените водоеми може да представлява значителен риск за човешкото здраве, а компактните, евтини и бързи анализи на тежки метали са глобален приоритет. Като мишена за тестване на оптичен ДНК биосензор за детектиране на йони на тежки метали, които са изключително токсични и често срещани замърсители в околната среда, бяха използвани живачни йони (Hg2+). Биосензорът е компактен, евтин и бърз с in situ скрининг на Hg2+ в естествени води за по-малко от 10 минути. Принципът на детекция е фокусиран върху способността на определени метални йони да се свързват селективно с определени основи, за да образуват стабилни, метал-медиирани ДНК дуплекси; в случая на Hg2+, тиминовите бази могат да бъдат селективно координирани, за да образуват стабилни тимин-Hg2+-тиминови комплекси. В диапазонът на детекция между 0 и 1000 nM е достигнат лимит на детецкия от 1,2 nM, което е по-ниско от максималната стойност, поискана от Агенцията за опазване на околната среда на САЩ (10 nM).
За детектиране на Pb2+ във водни проби (проби от изкуствена и естествена езерна вода), използващи ДНК ензими/карбоксилирани магнитни перли и ДНК аптамери, наскоро бяха предложени два оптични биосензора на флуоресцентна основа. Лимитите на детекция съответно 5 nM и 61 nM бяха наблюдавани от биосензори на базата на ДНК ензими и ДНК аптамери, със съответния линеен диапазон на детекция от 0 до 50 nM и 100 до 1000 nM. Използвано на уникално багрило (SYBER Green I), което беше вмъкнато с двуверижна ДНК, показващо силен интензитет на флуоресценция, както се вижда на Фигура 5. Освен това, липсата на интензивност на флуоресценция на биосензор се наблюдава само с багрилото (крива a). С ДНК ензим + Pb2+ (крива b) интензитетът на флуоресценция се увеличава с добавянето на багрилото + ДНК ензим + Pb2+, илюстрирайки чувствителността на биосензора към Pb2+.

Фигура 5 – Спектри на флуоресцентни емисии, получени с биосензора с багрилото (крива a), с ДНК ензим и Pb2+ (крива b) и с багрилото, ДНК ензим/карбоксилирани магнитни перли и Pb2+ (крива c); λex = 490 nm и λem = 530 nm (Препечатано от [89] с любезно разрешение от Springer)
Токсини
Вредни токсини като бреветоксини и микроцистини се създават чрез еутрофикация на водните системи чрез цъфтежа на водораслите на цианобактерии и по този начин са необходими точни и рентабилни системи за ранна детекция на такива токсини. За чувствителното детектиране на бреветоксин-2, морски невротоксин, е използван електрохимичен аптасензор, съставен от златни електроди, функционализирани със самосглобени монослоеве от цистеамин. Постига се лимит на детекция от 106 pg mL-1 и се наблюдава силна селективност за бреветоксин-2 спрямо други токсини от различни групи, като окадаинова киселина и микроцистин. Възможността на аптасензора за детекция на бреветоксин-2 в реални проби е постигната чрез анализ на миди и са докладвани силни възстановявания (102-110 %), което показва, че няма взаимодействие с отговора на аптасензора от структурата на черупчестите.
Разрушаващи ендокринната система химикали
Във водни проби чрез аптасензори на базата на флуоресцентния принцип с функционализирани аптамери (флуоресцеин амидит) и златни наночастици и на базата на оптично влакно е открит бисфенол А, който разрушава ендокринната система. Аптасензорът с оптични влакна е компактен и се оказава бърз, рентабилен, чувствителен и селективен за детекция на бисфенол А във водни проби, без да се изискват предварително концентриране или етапи на обработка. Освен това, аптасензорът може да се използва повторно за 90 s чрез регенериране с 0,5% разтвор на натриев додецил сулфат (SDS) и по-нататъшно измиване с фосфатно буфериран физиологичен разтвор (PBS) (рН 7,2) за над сто цикъла на анализ без забележима загуба на ефективност. Подобни лимити на детекция (0,1 и 0,45 ng mL-1) са наблюдавани и в двата оптични биосензора, където ДНК сонда, която е с консенсусна последователност на малка фракция от бисфенол А аптамер, е адсорбирана чрез електростатично взаимодействие на повърхността на наночастиците от злато и ковалентно имобилизирани на повърхността на влакното. Напоследък за детектиране на бисфенол А в проби от речна вода, използвайки нанотръби от молибденов карбид, беше предложен друг аптасензор на флуоресцентна основа. С такъв евтин и лесен за използване аптасензор е получен нисък лимит на детекция от 0,23 ng mL-1. Специфичността на аптасензора беше оценена чрез анализ на други молекули със структури, подобни на тази на бисфенол А (например, 4,4J-бифенол, бисфенол AF и 4,4J-сулфонилдифенол) и бяха идентифицирани само фонови сигнали, показващи висока специфичност за бисфенол А.
Електрохимичен имуносензор за еднократна употреба, базиран на полеви транзистор със SWCNT, наскоро беше използван в проби от морска вода за оценка на друг разрушаващ ендокринните вещества химикал – 4-нонилфенол. Имуносензорът има висока възпроизводимост (0,56 ± 0,08%), средна възпроизводимост от 97,8% до 104,6% и нисък лимит на детекция (5 μg L-1), която е по-ниска от препоръчителната максимална концентрация от 7 μg L-1 по съответните разпоредби. В проби от морска вода, като 4-нонилфенол, биосензорът може да се използва за детекция на опасни приоритетни вещества, дори при ниски концентрации и с лесна и евтина методология.
Други съединения на околната среда
Нови, бързи и точни аналитични подходи са необходими за ранната детекция и мониторинг на различни други опасни съединения, отделяни по време на цъфтежа на водорасли. Поради отличната чувствителност и специфичност на пробите за нуклеинови киселини към техните комплементарни свързващи партньори, са разработени биосензори за детекция на РНК на водорасли. За засилено селективно и чувствително детектиране на РНК от 13 вредни водорасли, наскоро беше докладван електрохимичен геносензор на базата на ситоотпечатан златен електрод; геносензорът може да различи РНК мишени от проби от околната среда (проби от морска вода с шипове), съдържащи 105 клетки, считани за лимит на детекция.
Тест: РО3 Ниво за напреднали
Препратки
- Adami A; Mortari A; Morganti E; Lorenzelli L. 2018. Microfluidic Sample Preparation Methods for the Analysis of Milk Contaminants. Available online: https://www.hindawi.com/journals/js/2016/2385267/
- Al-Mawali A. 2015. Non-communicable diseases: shining a light on cardiovascular dis- ease, Oman’s biggest killer. Oman Med. J., 30 (4): 227.
- Arduini F, Guidone S, Amine A, Palleschi G, Moscone D. 2013. Acetylcholinesterase biosensor based on self-assembled monolayer-modified gold-screen printed electrodes for organophosphorus insecticide detection. Sens. Actuators B Chem., 179: 201–208.
- Arduini F, Cinti S, Scognamiglio V, Moscone D. 2016. Nanomaterials in electrochemical biosensors for pesticide detection: advances and challenges in food analysis. Microchim. Acta, 183: 2063–2083.
- Arugula MA, Simonian AL. 2016. Biosensors for Detection of Genetically Modified Organisms in Food and Feed. In Genetically Modified Organisms in Food, Elsevier: Amsterdam, The Netherlands, pp. 97–110, ISBN 978-0-12-802259-7.
- Ayari-Jeridi H. et al. 2015. Mutation spectrum of RB1 gene in unilateral retinoblastoma cases from Tunisia and correlations with clinical features. PLoS One, 10 (1): e0116615.
- Bahadır EB, Sezgintürk MK. 2017. Biosensor technologies for analyses of food contaminants. In Nanobiosensors, Elsevier: Amsterdam, The Netherlands, pp. 289–337, ISBN 978-0-12-804301-1.
- Baldwin CJ. 2015. Introduction to the Principles. In The 10 Principles of Food Industry Sustainability, John Wiley & Sons, Ltd.: Hoboken, NJ, USA, pp. 1–14, ISBN 978-1-118-44769-7.
- Beck MB, Walker VR. 2013. On water security, sustainability, and the water-food-energy-climate nexus. Front. Environ. Sci. Eng., 7: 626–639.
Belkhamssa N, da Costa JP, Justino CIL, Santos PSM, Cardoso S, Duarte AC, Rocha-Santos T, Ksibi M. 2016. Development of an electrochemical biosensor for alkylphenol detection. Talanta, 158: 30–34. - Bhalla N. et al. 2016. Introduction to biosensors. Essays Biochem., 60 (1): 1–8.
- Bohunicky B, Mousa SA. 2011. Biosensors: the new wave in cancer diagnosis. Nanotechnol. Sci. Appl., 4: 1.
- Bourne MC. 2014. Food Security: Postharvest Losses. In Encyclopedia of Agriculture and Food Systems, Elsevier: Amsterdam, The Netherlands, pp. 338–351, ISBN 978-0-08-093139-5.
- Bruen D et al. 2017. Glucose sensing for diabetes monitoring: recent developments. Sensors, 1866.
- Burris KP, Stewart CN. 2012. Fluorescent nanoparticles: Sensing pathogens and toxins in foods and crops. Trends Food Sci. Technol., 28: 143–152.
Byrne B et al. 2009. Antibody-based sensors: principles, problems and potential for detection of pathogens and associated toxins. Sensors, 9 (6): 4407–4445. - Cash KJ, Clark HA. 2010. Nanosensors and nanomaterials for monitoring glucose in diabetes. Trends Mol. Med., 16 (12): 584–593.
- Chao R, Mishra S, Si T, Zhao H. 2017. Engineering biological systems using automated biofoundries. Metab. Eng., 42: 98–108.
- Chen Y, Li H, Gao T, Zhang T, Xu L, Wang B, Wang J, Pei R. 2018. Selection of DNA aptamers for the development of light-up biosensor to detect Pb(II). Sens. Actuators B Chem., 254: 214–221.
- Eissa S, Siaj M, Zourob M. 2015. Aptamer-based competitive electrochemical biosensor for brevetoxin-2. Biosens. Bioelectron., 69: 148–154.
- Elmore S. 2007. Apoptosis: a review of programmed cell death. Toxicol. Pathol., 35 (4): 495–516.
- Enrico DL, Manera MG, Montagna G, Cimaglia F, Chesa M, Poltronieri P, Santino A, Rella R. 2013. PR based immunosensor for detection of Legionella pneumophila in water samples. Opt. Commun., 294: 420–426.
- EPA. National Recommended Water Quality Criteria—Aquatic Life Criteria Table. Available online: http://www.epa.gov/wqc/national-recommended-water-quality-criteria-aquatic-life-criteria-table
- Fei A, Liu Q, Huan J, Qian J, Dong X, Qiu B, Mao H, Wang K. 2015. Label-free impedimetric aptasensor for detection of femtomole level acetamiprid using gold nanoparticles decorated multiwalled carbon nanotube-reduced graphene oxide nanoribbon composites. Biosens. Bioelectron., 70: 122–129.
- Foudeh AM, Trigui H, Mendis N, Faucher SP, Veres T, Tabrizian M. 2015. Rapid and specific SPRi detection of L. pneumophila in complex environmental water samples. Anal. Bioanal. Chem., 407: 5541–5545.
- Garnet TF. 2013. Food sustainability: Problems, perspectives and solutions. Proc. Nutr. Soc., 72: 29–39.
- Gheorghe I, Czobor I, Lazar V, Chifiriuc MC 2017. Present and perspectives in pesticides biosensors development and contribution of nanotechnology. In New Pesticides and Soil Sensors, Elsevier: Amsterdam, The Netherlands, pp. 337–372, ISBN 978-0-12-804299-1.
- Ghorashi M. 2018. Technology’s Role in Eradicating Foodborne Illness. Available online: https://www.foodsafetymagazine.com/signature-series/technologye28099s-role-in-eradicating-foodborne-illness/
- Giacinti C, Giordano A. 2006. RB and cell cycle progression. Oncogene, 25 (38): 5220–5227.
- Guo L, Li Z, Chen H, et al. 2017. Colorimetric biosensor for the assay of paraoxon in environmental water samples based on the iodine-starch color reaction. Anal. Chim. Acta, 967: 59–63.
- Hameed I, et al. 2015. Type 2 diabetes mellitus: from a metabolic disorder to an inflammatory condition. World J. Diabetes, 6 (4): 598.
Hassani S, Momtaz S, Vakhshiteh F, et al. 2017. Biosensors and their applications in detection of organophosphorus pesticides in the environment. Arch. Toxicol., 91: 109–130. - He MQ, Wang K, Wang J, Yu YL, He RH. 2017. A sensitive aptasensor based on molybdenum carbide nanotubes and label-free aptamer for detection of bisphenol A. Anal. Bioanal. Chem., 409: 1797–1803.
- Holford TR et al. 2012. Recent trends in antibody based sensors. Biosens. Bioelectron., 34 (1): 12–24.
- Hughes RA, Ellington AD. 2017. Synthetic DNA synthesis and assembly: Putting the synthetic in synthetic biology. Cold Spring Harb. Perspect. Biol., 9.
- Husu I, Rodio G, Touloupakis E, et al. 2013. Insights into photo-electrochemical sensing of herbicides driven by Chlamydomonas reinhardtii cells. Sens. Actuators B Chem., 185: 321–330.
- Jain KK. 2004. “Applications of biochips: from diagnostics to personalized medicine.” Curr Opin Drug Discov Devel, 7(3): 285-289.
- Jiang D, Du X, Liu Q, Zhou L, Dai L, Qian J, Wang K. 2015. Silver nanoparticles anchored on nitrogen-doped graphene as a novel electrochemical biosensing platform with enhanced sensitivity for aptamer-based pesticide assay. Analyst, 140: 6404–6411.
- Justino CIL, Freitas AC, Duarte AC, Santos TAPR. 2015. Sensors and biosensors for monitoring marine contaminants. Trends Environ. Anal. Chem., 6–7: 21–30.
- Justino CIL, Freitas AC, Pereira R, Duarte AC, Rocha-Santos TAP. 2015. Recent developments in recognition elements for chemical sensors and biosensors. Trends Anal. Chem., 68: 2–17.
- Kazemi-Darsanaki R et al. 2012. Biosensors: functions and applications. J. Biol. Today’s World, 2 (1): 20–23.
- Khot LR, Sankaran S, Maja JM, Ehsani R, Schuster EW. 2012. Applications of nanomaterials in agricultural production and crop protection: A review. Crop Prot., 35: 64–70.
- Kost GJ, Tran NK., 2005. Point-of-care testing and cardiac biomarkers: the standard of care and vision for chest pain centers. Cardiol. Clin., 23 (4): 467–490.
- Lang Q, Han L, Hou C, Wang F, Liu A. 2016. A sensitive acetylcholinesterase biosensor based on gold nanorods modified electrode for detection of organophosphate pesticide. Talanta, 156: 34–41.
- Lee EY, Muller WJ. 2010. Oncogenes and tumor suppressor genes. Cold Spring Harb. Perspect. Biol., 2 (10): a003236.
- Li Z, Yu Y, Li Z, Wu T. 2015. A review of biosensing techniques for detection of trace carcinogen contamination in food products. Anal. Bioanal. Chem., 407: 2711–2726.
- Liao W, Lu X. 2016. Determination of chemical hazards in foods using surface-enhanced Raman spectroscopy coupled with advanced separation techniques. Trends Food Sci. Technol., 54: 103–113.
- Long F, Zhu A, Shi H, Wang H, Liu J. 2013. Rapid on-site/in-situ detection of heavy metal ions in environmental water using a structure-switching DNA optical biosensor. Sci. Rep., 3: 2308.
- Loo C, et al. 2005. Immunotargetednanoshells for integrated cancer imaging and therapy. Nano Lett., 5 (4): 709–711.
- Maduraiveeran G, Jin W. 2017. Nanomaterilas based electrochemical sensor and biosensor platforms for environmental applications. Trends Environ. Anal. Chem., 13: 10–23.
- Marcellin E, Nielsen LK 2018. Advances in analytical tools for high throughput strain engineering. Curr. Opin. Biotechnol., 54: 33–40.
- Martín-Timón I et al. 2014. Type 2 diabetes and cardiovascular disease: have all risk factors the same strength? World J. Diabetes, 5 (4): 444.
- Mayorga-Martinez C, Pino F, Kurbanoglua S, et al. 2014. Iridium oxide nanoparticles induced dual catalytic/inhibition based detection of phenol and pesticide compounds. J. Mater. Chem. B, 2: 2233–2239.
- McPartlin DA, Loftus JH, Crawley AS, et al. 2017. Biosensors for the monitoring of harmful algal blooms. Curr. Opin. Biotechnol., 45: 164–169.
- Mehrotra P. 2016. Biosensors and their applications – a review. J. Oral. Biol. Craniofac Res., 6 (2): 153–159.
- Meriç S, Çakır Ö, Turgut-Kara N, Arı S. 2014. Detection of genetically modified maize and soybean in feed samples. Genet. Mol. Res., 13: 1160–1168.
- Moran KLM, Fitzgerald J, McPartlin DA, Loftus JH, O’Kennedy R. 2016. Biosensor-Based Technologies for the Detection of Pathogens and Toxins. In Comprehensive Analytical Chemistry, Elsevier: Amsterdam, The Netherlands, Volume 74, pp. 93–120, ISBN 978-0-444-63579-2.
- Mungroo NA, Neethirajan S. 2014. Biosensors for the Detection of Antibiotics in Poultry Industry—A Review. Biosensors, 4: 472–493.
- Ngoepe M et al. 2013. Integration of biosensors and drug delivery technologies for early detection and chronic management of illness. Sensors, 13 (6): 7680–7713.
- Omidfar K. et al. 2013. New analytical applications of gold nanoparticles as label in antibody based sensors. Biosens. Bioelectron., 43: 336–347.
Orozco J, Villa E, Manes C, Medlin LK, Guillebault D. 2016. Electrochemical RNA genosensors for toxic algal species: Enhancing selectivity and sensitivity. Talanta, 161: 560–566. - Patra S, Roy E, Madhuri R, Sharma PK. 2017. A technique comes to life for security of life: The food contaminant sensors. In Nanobiosensors, Elsevier: Amsterdam, The Netherlands, pp. 713–772, ISBN 978-0-12-804301-1.
- Pola-López LA, Camas-Anzueto JL, Martínez-Antonio A, et al. 2018. Novel arsenic biosensor “POLA” obtained by a genetically modified E. coli bioreporter cell. Sens. Actuators B Chem., 254: 1061–1068.
- Ragavan KV, Selvakumar LS, Thakur MS. 2013. Functionalized aptamers as nano-bioprobes for ultrasensitive detection of bisphenol-A. Chem. Commun., 49: 5960–5962.
- Rapini R, Marrazza G. 2016. Biosensor Potential in Pesticide Monitoring. In Comprehensive Analytical Chemistry, Elsevier: Amsterdam, The Netherlands, Volume 74, pp. 3–31, ISBN 978-0-444-63579-2.
- Ravikumar A, Panneerselvam P, Radhakrishnan K, et al. 2017. DNAzyme based amplified biosensor on ultrasensitive fluorescence detection of Pb(II) ions from aqueous system. J. Fluoresc., 27: 2101–2109.
- Rocchitta G, et al. 2016. Enzyme biosensors for biomedical applications: strategies for safeguarding analytical performances in biological fluids. Sensors, 16 (6).
- Rotariu L, Lagarde F, Jaffrezic-Renault N, Bala C. 2016. Electrochemical biosensors for fast detection of food contaminants—Trends and perspective. TrAC Trends Anal. Chem., 79: 80–87.
- Saucedo NM, Mulchandan A. 2016. Sensing of Biological Contaminants. In Comprehensive Analytical Chemistry, Elsevier: Amsterdam, The Netherlands, Volume 74, pp. 73–91, ISBN 978-0-444-63579-2.
- Shi H, Zhao G, Liu M, Fan L, Cao T. 2013. Aptamer-based colorimetric sensing of acetamiprid in soil samples: Sensitivity, selectivity and mechanism. J. Hazard. Mater., 260: 754–761.
- Singh M, del Valle M. 2015. Arsenic Biosensors. In Handbook of Arsenic Toxicology, Elsevier: Amsterdam, The Netherlands, pp. 575–588, ISBN 978-0-12-418688-0.
- Sinha K, Ghosh J, Sil PC. 2017. New pesticides: A cutting-edge view of contributions from nanotechnology for the development of sustainable agricultural pest control. In New Pesticides and Soil Sensors, Elsevier: Amsterdam, The Netherlands, pp. 47–79, ISBN 978-0-12-804299-1.
- Sodano V, Gorgitano MT, Quaglietta M, Verneau F. 2016. Regulating food nanotechnologies in the European Union: Open issues and political challenges. Trends Food Sci. Technol., 54: 216–226.
- Specht K, Siebert R, Hartmann I, et al. 2014. Urban agriculture of the future: An overview of sustainability aspects of food production in and on buildings. Agric. Hum. Values, 31: 33–51.
- Stadler RH. 2016. Foreword for Food Processing—Derived Contaminants in Food Analysis. In Reference Module in Food Science, Elsevier: Amsterdam, The Netherlands, ISBN 978-0-08-100596-5.
- Tabish SA. 2007. Is diabetes becoming the biggest epidemic of the twenty-first century? Int J. Health Sci. 1 (2), V–VIII.
- Templier V, Roux A, Roupioz Y, Livache T. 2016. Ligands for label-free detection of whole bacteria on biosensors: A review. TrAC Trends Anal. Chem., 79: 71–79.
- Thomas S, et al. 2015. The expression of retinoblastoma tumor suppressor protein in oral cancers and precancers: a clinicopathological study. Dent. Res. J., 12 (4): 307.
- Tian L, Hires SA, Mao T, et al. 2009. Imaging neural activity in worms, flies and mice with improved GAaMP calcium indicators. Nat. Methods, 6: 875–881.
- Turner AP. 2013. Biosensors: Sense and sensibility. Chem. Soc. Rev., 42: 3184–3196.
- USEPA. Mercury Update: Impact of Fish Advisories, EPA Fact Sheet EPA-823-F-01-011, EPA, Office of Water: Washington, DC, USA, 2001.
- Valastyan S, Weinberg RA. 2011. Tumor metastasis: molecular insights and evolving paradigms. Cell, 147 (2): 275–292.
- Verma N, Kaur G. 2016. Trends on Biosensing Systems for Heavy Metal Detection. In Comprehensive Analytical Chemistry, Elsevier: Amsterdam, The Netherlands, Volume 74, pp. 33–71, ISBN 978-0-444-63579-2.
- Vu T, Claret FX. 2012. Trastuzumab: updated mechanisms of action and resistance in breast cancer. Front. Oncol., 2: 62.
- Way JC, Collins JJ, Keasling JD, Silver PA. 2014. Integrating biological redesign: Where synthetic biology came from and where it needs to go. Cell, 157: 151–161.
- Weng X, Neethirajan S. 2017. Ensuring food safety: Quality monitoring using microfluidics. Trends Food Sci. Technol., 65: 10–22.
- Xiao Y, Lubin AA, Heeger AJ, Plaxco KW. 2005. Label-free electronic detection of thrombin in blood serum by using an aptamer-based sensor. Angew. Chem. Int. Ed. Engl., 44: 5456–5459.
- Yildirim N, Long F, He M, Shi HC, Gu AZ. 2014. A portable optic fiber aptasensor for sensitive, specific and rapid detection of bisphenol-A in water samples. Environ. Sci. Process Impacts, 16: 1379–1386.
- Yoshida K, Miki Y. 2004. Role of BRCA1 and BRCA2 as regulators of DNA repair, transcription, and cell cycle in response to DNA damage. Cancer Sci., 95 (11): 866–871.
- Zhang D, Lu Y, Zhang Q, et al. 2015. Nanoplasmonic monitoring of odorants binding to olfactory proteins from honeybee as biosensor for chemical detection. Sens. Actuators B Chem., 221: 341–349.
- Zhang F, Zhang Q, Zhang D, Lu Y, Liu Q, Wang P. 2014. Biosensor analysis of natural and artificial sweeteners in intact taste epithelium. Biosens. Bioelectron., 54: 385–392.
- Zhang W, Asiri AM, Liu D, Du D, Lin Y. 2015. Nanomaterial-based biosensors for environmental and biological monitoring of organophosphorus pesticides and nerve agents. Trends Anal. Chem., 54: 1–10.
Общодостъпни научни ресурси: Дигитални бази данни
ОСНОВНО НИВО
Общият (отворен) достъп, или OД, е набор от принципи и практики, чрез които научните резултати се разпространяват онлайн, безплатно и без допълнителни ограничения.
Съдържание
Общодостъпни научни ресурси
Въведение в „Общодостъпните“ ресурси
Общият (отворен) достъп, или OД, е набор от принципи и практики, чрез които научните резултати се разпространяват онлайн, безплатно и без допълнителни ограничения. Чрез прилагането на лиценз за авторски права към тях, в рамките на строго дефинирания общ достъп (съгласно определението от 2001 г.), или безплатен отворен достъп, се намаляват или премахват ограниченията пред тяхното копиране и повторна употреба.
Основен фокус на общия достъп до данни е „рецензираната научна литература“. В исторически план, общият достъп възниква с печатните академични списания. Докато конвенционалните (без общ достъп) списания покриват своите разходи за публикуване чрез такси за достъп като абонаменти, лицензи за сайт или такси за достъп, списанията с общ достъп се характеризират с финансиране, което не изисква четящият да заплаща за достъп до съдържанието на списанието. Общият достъп може да бъде приложен към всички форми на публикувани научни резултати, включително рецензирани и не рецензирани статии в академични списания, доклади от конференции, дисертации, глави от книги, монографии и снимки.
Все пак обаче, когато става въпрос за „отворен” достъп, трябва да се разграничи „безплатен” (gratis) от „свободен” (libre) достъп.
За да се отразят реалните различия в степента на отворен достъп, разграничаването между безплатен отворен достъп и свободен отворен достъп е дефинирано през 2006 г. от Хитър Субер и Стивън Харнад, двама от основателите на Будапещенската инициатива за отворен достъп (Budapest Open Access Initiative, BOAI). Безплатен отворен достъп се отнася към безплатен онлайн достъп до материали, докато свободния отворен достъп се отнася към безплатен онлайн достъп плюс някои допълнителни права за повторно използване на материалите. Свободният отворен достъп е еквивалентен на отворения достъп съгласно дефиницията на BOAI, Становището от Бъдезда за отворен достъп до публикувани данни и Декларацията от Берлин за отворен достъп до знания в областта на природните и хуманитарните науки. Правата за повторно използване на данни в рамките на свободния отворен достъп често се определят от различни специфични “Creative Commons” (авторско-общи) лицензи, като почти всички от тях изискват признаване на авторство на първоначалните източници на данни.
Документът, публикуван през февруари 2002 г. от BOAI съдържа следната широко използвана дефиниция:
- Под“отворен достъп“ до литература, се има предвид нейната безплатна достъпност в публичното интернет пространство, позволяваща на всички потребители да четат, изтеглят, копират, разпространяват, отпечатват, търсят или правят връзки към пълния текст на статиите, индексират, използват ги като данни за софтуер или други законни цели, без финансови, правни или технически ограничения, различни от тези, които са неделима част от получаването на достъп до интернет. Единственото ограничение за възпроизвеждането и разпространението на данни са авторските права, които дават възможност на авторите да контролират целостта на тяхната разработка и да определят необходимостта да бъде признато тяхното авторство и да бъдат цитирани.
Имайки предвид горната информация, използването на общодостъпните научни ресурси трябва да следва общи правила. При публикуването на научни ресурси с отворен достъп трябва ясно да бъде определено дали те са свободни или безплатни, както и трябва да бъде споменат техния първоначален автор.
Въведение в данните (основно ниво)
Какво са „данни”
Съгласно речника на Мериам-Уебстър, съществуват три различни определения за данни:
- Фактическа информация, такава като измервания или статистика, въз основа на която се разсъждава, дискутира или се правят изчисления.
- Информация в числов вид, която може да се предава или обработва.
- Информация от сензорно устройство или апарат, която съдържа както необходима, така и неподходяща или излишна информация, и която трябва да се обработи, за да придобие смисъл.
В този материал ще разгледаме повече от тези три определения.
Кратка история на данните
Откакто хората са започнали да комуникират, те изпитвали необходимост да съхраняват информацията за дълъг период от време. Съхраняването на информация било необходимо на нашите предци, за да осигури тяхното оцеляване. Предаването на информация между поколенията позволявало да се помнят местата, криещи потенциална опасност, а също и тези, които били най-подходящи за събирането на храна, риболов, където живеели най-добрите животни за лов, както и местата, предлагащи най-добрите укрития. Цялата тази информация се предавала устно. С развитието на знанията и изобретяването на писмеността, нашите предци започнали да съхраняват информацията на трайни носители.
Без да навлизаме в подробности относно развитието на начина на представяне на информация, ще бъдат представени някои важни примери, имащи значение за структурирането на мисленето, което от своя страна е довело до откриването на компютърните инструменти използвани ежедневно.
Данните преди изобретяването на компютрите
С възникването на човешкото общество, колективната мотивираност за развитие на писмеността се ръководела от прагматична необходимост. Тази необходимост се определяла от това обществото да бъде организирано и ръководено чрез създаването на правни системи, договори, актове за собственост, данъчно облагане, търговски споразумения, спогодби, регистри от преброяване, водене на история, поддържане на културата, проследяване на научни открития, кодифициране на знания чрез курсове за обучение и набор от текстове, които са изключително художествени или съдържат фундаментални знания, както и много други нужди.

Фигура 1: Клинопис
Например, около 4 в. пр.н.е., комплексният характер на търговията и администрацията на Месопотамия надвишил човешката памет и писането ставало по-надежден метод за записване и представяне на договорен обмен между страните в една постоянна, дългосрочна форма.
Клинописът е една от най-древните системи на писменост, изобретена от шумерите в древна Месопотамия. Отличава се със своите клиновидни вдлъбнатини върху глинени плочи, направени с помощта на тъп тръстиков стилус, както е показано на фиг. 1.
С течение на времето, развитието на знанията, умножаването на информацията, ограниченията на човешката памет, нуждата от записване и съхранение на записи, съдържащи огромно количество от информация, придобива съществено значение. Въпреки това, при съхранението на записи, съдържащи почти всякакъв вид информация или данни, на различни носители, в случай на нужда, става все по-сложно тя да бъде извлечена по лесен начин. Необходимо е човек да прочете десетки доклади и книги, за да може да синтезира необходимата му информация по конкретен проблем.
Данните в модерната ера
Днес, количеството данни продуцирани ежегодно и съхранявани дигитално, като списъци със задачи, рецепти, напомняния, дневници, карти, снимки, електронни писма, научни данни, политически доклади, видеоклипове и др., нараства експоненциално. Това създава необходимост да бъде намерен начин, по които нужната информация да бъде извлечена от това феноменално количество данни.
Компютрите набират популярност и стават достъпни за употреба от частни лица и компании в началото на 80-те години на миналия век. Въпреки това, 60-те могат да се считат като „нова ера“ в областта на базите данни. Въвеждането на термина „база данни“ съвпада със създаването на хранилища с директен достъп или DAS (direct-access storage). Тази нова технология представлява противоположност на използваните преди това перфо-карти и базираните на лента системи, и позволява споделена, интерактивна употреба, а не ежедневна обработка на партиди от данни. Разработени били два основни модела на данни – мрежови модел „CODASYL“ (Conference on Data System Language) и йерархичен модел „IMS“ (Information Management System).
Първото поколение системи за бази данни било „навигационно“, противоположно на „последователния“ достъп при предходните технологии за съхранение на данни, т.е с използването на ленти и перфо-карти. Приложенията обикновено получавали достъп до данните чрез следването на указатели от един запис към друг. Детайлите на хранилището зависели от типа на данните, които се съхраняват в него.
Добавянето на допълнително поле към базите данни изисквало пренаписването на основната схема за достъп/модификация. Акцент бил поставян върху записите, които трябвало да бъдат пренаписани, а не върху цялостната структура на системата. В такъв случай, потребителят би трябвало да знае физичната структура на базата данни, за да изисква търсената информация. Базата данни, която имала успех била системата „SABRE“. Тя била използвана от IBM, за да подпомогне Американ Еърлайнс при управлението на данните за резервации. Тази система все още се използва от основните туристически агенции в техните схеми за резервации.
В съвременните информационни технологии, сред потребителите винаги е съществувало объркване между база данни и достъпните чрез браузер интернет базираните уеб търсачки. Базите данни обикновено съдържат структурирани данни, за разлика от интернет World Wide Web (www), където обикновено се съдържат неструктурирани данни. Дори извличането на информация от двата типа системи, база данни и „www“ да е безпроблемно и да изглежда сходно, съдържанието и начинът на адресиране на заявките са напълно различни. Структурираните и неструктурираните данни ще бъдат разгледани подробно по-надолу в този материал.
Разбиране на основните термини
Терминология
Както всяка друга наука, компютърната наука има свой собствен език. За да разберете напълно информацията представена в този материал, е необходимо да се запознаете с термините, касаещи конкретната тематика.
Освен това, ще бъде улеснена комуникацията с администратора на базата данни (АБД, Database Administrator, DBA). Когато е необходимо биохимик да обясни своите нужди по отношение на структурирането и управлението на данни в базите данни, той би използвал свой собствен техничен език. В такъв случай АБД ще трябва да разбере подадената заявка и да я трансформира в компютърен език, който да бъде разбираем за биохимика.
Какво са „Данни“ в ерата на компютрите

Както бе споменато в част 2.1, според областта за която се отнасят, данни могат да имат различно значение. Когато става въпрос за изчисления и бази данни, данни се дефинира като последователност от един или повече символи. В този случай данните трябва да бъдат интерпретирани, за да са превърнат в информация. В сферата на информационните технологии „бит“ е най-малкото количество информация. Битът е двоичен. Двоичните числа представляват числа, при чиито запис се използват само две цифри, 0 и 1 (фиг. 2). Това е цифрова система изградена на базата на числото 2, т.e.:
- 0 0 0 1 = числова стойност 20
- 0 0 1 0 = числова стойност 21
- 0 1 0 0 = числова стойност 22
- 1 0 0 0 = числова стойност 23

Последователност от „битове“ образува „байт“. Байтовете са съвкупност от битове, чиято бройка е кратна на 4 (байт от 4 бита се нарича нибъл) както е представено на примера по-горе. Днес, байтът е единица за цифрова информация, която най-често се състой от 8 бита. В миналото, байтът бе съвкупност от битове използвани за кодиране на единичен символ в компютъризиран текст. С байт от 8 бита максималното десетично число е 256. В исторически план, байтът е и единица за компютърна информация или капацитет за съхранение на данни, използвана за измерване на количество данни. (Таблица 1).

Пример за такъв тип употреба е ASCII таблицата (Американски Стандартен Код за Обмен на Информация, American Standard Code for Information Interchange), съдържаща знаци, често използвани за обозначаване на азбучни символи (Таблица 2). Първите 32 знака се наричат контролни знаци. Първоначално те не са били проектирани да предават информация за печат, а да осъществяват контрол над устройството, което използва ASCII табличния код (напр. принтер), или да предоставят информация за потока от метаданни, например тези съхранявани на магнитна лента.
Какво са “Метаданни”

Метаданни, или по-просто казано, метаинформация, се използват за препратка към данни за данните. Наличието на данни не е достатъчно, за да могат те да бъдат просто поставени онлайн. Данните са неизползваеми, докато не бъдат обяснени по начин, по който хората и компютрите да могат да ги използват.
Метаданните могат да бъдат подразбиращи се, уточняващи или определящи. Те могат да включват данни свързани с физически събития или процеси, както и такива за времевия компонент. Почти винаги този времеви компонент е по подразбиране. Това вероятно е малко сложно да бъде разбрано, но следващият пример ще внесе малко повече яснота в обяснението на този термин.
Представете си, че сте на пътешествие с любимия си смартфон и се намирате на някой райски остров. Правите снимки (фиг. 3), за да запазите хубавите моменти от това пътуване. Седмица по-късно, пътуването ви приключва и вие трябва да се върнете вкъщи.

Метаданни върху снимка
Когато се приберете вкъщи, вие каните най-добрите си приятели на парти и искате да им покажете красивите места, които сте видели по време на вашето пътуване. Започвате да им показвате снимките, но за някои от тях не можете да си спомните деня, по кое време са били направени и къде са направени. В такъв случай могат да ви помогнат метаданните. Или, казано с други думи, метаданните са описание на данните. В този пример, снимката представлява данните, а описанието на снимката – метаданните (фиг. 4).
Трябва да бъде ясно, че в биотехнологията метаданните са дори по-важни от данните. Лесно е да се разбере причината, поради която метаданните са ключов компонент пряко свързан с данните. Представете си експеримент, който ще доведе до конкретен резултат. Този експеримент, за да е валиден, трябва да бъде документиран. Документацията трябва да включва всички условия, при които е проведен експеримента. Това може да включва описание на суровината, която е използвана, нейния източник, при какви условия е била събрана, типа на апаратите, използвани при експеримента, температурата, датата, часа и др. За да бъде резултатът от този експеримент сравним с резултатите от други подобни експерименти, то всички условия трябва да бъдат сходни. Необработените данни без метаданни са безполезни.
Най-голямото предизвикателство в биотехнологията, както и в другите науки, е стандартизацията на метаданните. В по-голяма част от биотехнологичните бази данни това правило не се спазва. Експериментаторът трябва да осъзнава това и да се отнася с респект към стандартизирането.
Какво е „База данни“

Най-общо казано, база данни се дефинира като набор от данни, такива като телефонни указатели, ценови листи, инвентарни списъци, адреси на клиенти и др. Независимо от това, погледнато технически, база данни се нарича „самоописващ се набор от интегрирани записи“. Това предполага компютърна технология допълнена от специфичен компютърен език, такъв като SQL (Език за Структурирани Заявки Structured Query Language,).
Базата данни се състои от множество таблици (фиг. 5), съдържащи както данни, така и метаданни. Метаданните са данни, които описват структурата на данните в рамките на базата данни. Ако знаете как вашите данни са подредени, вие можете лесно да ги извлечете. Тъй като базата данни съдържа описание на своята структура, тя се нарича самоописваща се. Базата данни е интегрирана, защото включва не само набор от данни, но и връзките между тях.
Базата данни съхранява метаданни в област наречена “речник на данни”, който “речник” описва таблиците, колоните, индексите, ограниченията и други елементи, които съставляват базата данни.
Тай като плоската файлова система, т.е. “електронната таблица” не съдържа метаданни, приложенията написани за работа с плоски файлове трябва да съдържат еквивалент на метаданните като част от тези приложения.
Какво са „Таблици“ в база данни
Таблицата е набор от свързани данни, организирани под формата на таблица, съставена от колони и редове в рамките на база данни. Тя е подобна на електронните таблици (фиг. 6).
Какво са „Колони“ в база данни

Колоната е набор от стойности на данни, всички от един и същ тип, част от таблица. Колоните определят данните в таблица. Повечето бази данни позволяват колоните да съдържат комплексни данни като изображения, цели документи или дори видео клипове. Следователно, колоната позволява стойности на данни от един и същ тип, но това не означава задължително, че има само прости текстови стойности. Някои бази данни отиват още по-далеч и позволяват данните да бъдат съхранявани като файлове в операционната система, докато данните в колоната съдържат само указател или връзка към действителния файл. Това се прави с цел лесна поддръжка на общия размер на базата данни – по-малки по размер бази данни означава по-малко време за архивиране и по-малко време необходимо за търсене в тази база данни.
В таблицата, обикновено всяка колона има ограничения относно типа на стойностите, които могат да бъдат съхранявани в нея. Например, една колона може да приема адреси за електронни пощи, а друга да приема числа, съставени от 10 цифри.
Какво е „Запис“
Записът е представяне на физически или идеен обект. Например, ако е необходимо да бъдат записани клиентите на даден бизнес. Прави се запис за всеки клиент. Всеки запис има множество атрибути, такива като име, адрес, телефонен номер и др. Индивидуалните номера, адреси и т.н. са данни.
Какво са „Индекси“

Структурираните данни се съхраняват под формата на записи в базата данни. Всеки запис има ключово поле, което му позволява да бъде разпознат по уникален начин, т.е. има свое ID на пациента. Никой друг пациент няма същия ID номер, въпреки че могат да съществуват двама пациенти с едно и също първо име и фамилия.
Индексирането на базата данни е техника за ефективно извличане на записи от файловете в базата данни, въз основа на някои атрибути, използвани при самото индексиране. Казано по-просто, индексирането в системите на базите данни е подобно на това, което се използва при книгите. В началото или в края на книгата може да бъде намерен такъв индекс (различен от съдържанието на книгата), който показва всички номера на страниците, касаеща специфична тема. Например, един географски атлас може да бъде разделен на глави, съдържащи карти, глави, съдържащи данни за населението и глави, относно производството или земеделска продукция. Ако вие търсите определена държава и бихте искали да направите общ преглед на всички данни за тази държава, индексът може да бъде много полезен, тъй като във всяка глава, той ще покаже съответната страница, касаеща тази държава (фиг. 7).
Какво е „Обект“
В компютърната наука, обектът може да бъда променлива величина, структура от данни, функция или метод, и като такава представлява стойност в паметта и е обозначена от идентификатор. При релационния модел на управление на бази данни, обектът може да бъде таблица или колона, или асоциация между данните и отделната единица в базата данни, като например връзката между възрастта на определен човек и конкретното лице.
Структурирани данни

Съгласно SNIA (Асоциация на индустрията за мрежово съхранение, Storage Networking Industry Аssociation), като структурирани данни се определят:
“Данни, които са организирани и форматирани по познат и фиксиран начин.
Форматът и организацията обикновено се определят по схема. Терминът структурирани данни обикновено се използва за данни, генерирани и поддържани от бази данни или бизнес приложения.”
Необходимо е да бъдат спазени три условия, за да бъдат едни данни определени като структурирани:
- трябва да съответстват на модела данни,
- трябва да имат добре дефинирана структура,
- трябва да следват определен ред и да бъдат лесно достъпни и удобни за употреба от човек или компютърна програма
Структурираните данни обикновено се съхраняват в добре дефинирани схеми каквито са базите данни. Обикновено тя е таблична с колони и редове, които ясно определят нейните атрибути (фиг. 8).
SQL езика (Structured Query language) често се използва за управление на структурирани данни в различните бази данни.
Неструктурирани данни

Информация, която не е структурирана в предварително дефиниран модел, се нарича неструктурирани данни или неструктурирана информация. В компютърната наука, файлове, съдържащи текст, снимки, видео, аудио и презентации се считат за неструктурирани файлове. Обикновено PDF файловете съдържат неструктурирани данни (фиг. 9).
Смята се, че 80 до 90% от общото количество нематериализирани данни са неструктурирани. Обичайните алгоритми не могат лесно и ефективно да извлекат необходимата информация от неструктуриран файл, така както е показана в примера на фиг. 9. Същата информация показана на фиг. 9 може лесно да бъде извлечена със заявка. Въпреки това обаче, днес са налични инструменти за анализ на неструктурирани данни, управлявани от изкуствен интелект (AI), които са специално създадени за достъп до наличните неструктурирани данни (виж 3.1.12 Анализ).
Големи данни
Според SNIA, големите данни се определят като:
“Набор от данни, които са твърде големи, за да бъдат ефективно обработени изцяло, дори от най-мощните съществуващи стандартни изчислителни платформи”
С други думи, Големите данни се отнасят до огромни количества структурирани или неструктурирани данни, които не могат да бъдат обработени от обичайния софтуер, каквито са традиционните езици за заявки към бази данни или друг тип механизми за извличане.
Съществува объркване по отношение на използването на термините Големи данни и Анализ. Големите данни са информация, докато Анализът е начина на извличане на желаната информация от огромното количество налична информация.
Анализ
В компютърните технологии, Анализът е метод за извличане на информация от големи данни.
В областта на здравеопазването, прилагането на Анализ на Големи данни доведе до множество подобрения, сред които персонализираната медицината и включването на прогнозен анализ. Тай като обемът на данните се увеличава драстично, традиционните бази данни и механизми за търсене не могат да обработят и извлекат конкретната информация. Данни за пациентите се генерират от ЯМР, рентгенови снимки, данни от кръвни тестове и сензори за мониторинг, както и от много други източници на сложни за обработка данни. Огромното количество информация в областта на здравеопазването вече се намира в електронна форма и се обособява като Големи данни, голяма част от които са неструктурирани и трудни за използване.
Използването на Големите данни в изследвания свързани със здравеопазването, са особено обещаващи, тъй като анализът, базиран на данни е по-надежден от този, базиран на хипотези. В последствие, тенденциите, наблюдавани при анализът на данни могат да бъде тестван при традиционни, базирани на хипотези биологични изследвания и евентуално клинични изпитвания.
Хранилище
Хранилището за данни, или склада за данни, е централизирано място за съхранение и поддържане на данните. Хранилището за данни може да съдържа един или повече файлове със структурирани данни, които могат да бъдат разпръснати в мрежа или да бъдат дългосрочно съхранявани.
Основна структура на базата данни
Този раздел е посветен на основните градивни единици, съставящи базата данни.
Въведение
От момента на изобретяване на компютрите, количеството на съхраняваните и управлявани данни се увеличава драстично. Смята се, че през 2025 година, количеството на данните ще достигне до 175 зетабайта (1021 байта) за разлика от няколкото петабайта (1015 байта) през 2000 година. Един от често срещаните начини за опростяване живота на потребителите е чрез повишаване ефективността на съхранение и извличане на информация от техните ресурси. Например, докато плоският файл е чудесен начин за съхранение на персонална информация, такава като адресна книга или списък с рецепти, тази тип файл не е подходящ за съхраняване на телефонните номера на жителите на един град или на геномни данни в областта на биотехнологиите. Освен това, ако искате да съхранявате данни за генома на няколко вида, много е трудно те да бъдат съхранявани, и по-късно извлечени, от плосък файл. Базите данни предлагат решение на този проблем като улесняват съхранението, обработката и извличането на информация.
Софтуерът, използван за управление на базата данни се нарича система за управление на база данни (СУБД, database management system, DBMS). Този специализиран софтуер действа като посредник, който подпомага крайния потребител да получи достъп до базата данни. Обикновено потребителите не взаимодействат директно с базата данни, защото това може да доведе до нейната дезорганизация. Вместо това, те използват системата за управление на базата данни (СУБД ), която чете данни от или записва данни в базата данни.
Нарастващата сложност на големите количества данни наложи някои компании да използват инструменти за управление на данни базирани на релационния модел, какъвто е класическият РСУБД. РСУБД означава Релационна система за управление на база данни (Relational Database Management System, RDBMS). Въпреки това, големите интернет компании като Google, Yahoo и Amazon, или всички популярни социални медии , се сблъскаха с редица предизвикателства при работата с огромните количества данни в реално време, нещо, с което конвенционалните РСУБД не можеха да се справят. Това обяснява нарастващата популярност на NoSQL системите за бази данни, които възникват успоредно с останалите системи.
NoSQL системите са разпределени, нерелационни бази данни предназначени за широкомащабно съхранение на данни, както и за масивно-паралелна, високоефективна обработка на данни в голям брой конвенционални сървъри. Този тип системи възникват поради необходимостта от гъвкавост, висока производителност и мащабност и могат да бъдат използвани в различни случаи, включително изследователски и прогнозен анализ в реално време. Създадени от най-добрите интернет компании, за да вървят в крак с нарастващия поток от данни, NoSQL базите данни се мащабират хоризонтално, и са проектирани да мащабират до стотици, милиони и дори милиарди потребители, извършващи актуализации или четящи в базата данни.
NoSQL базите данни най-често намират приложение в социалните медии, при големите доставчици на електронна поща и в различни държавни системи в областта на здравеопазването.
Обикновено едно социално приложение може да се мащабира от нула до милиони потребители за няколко седмици и с цел по-добра организация на това нарастване е необходима база данни, която да може да управлява голям брой потребители и данни, а също така и да бъде лесно мащабирана хоризонтално.
В този материал ние ще се фокусираме само върху СУБД и РСУБД. Това са двата типа бази данни, които днес са най-широко използвани в областта на биотехнологията.
Преглед на архитектурата на базата данни

Базите данни могат да съхраняват всякакъв тип информация, от цифри и текст до електронни писма, интернет съдържание, телефонни номера, биологични и географски данни, и др. Базите данни са официално класифицирани според начина, по които съхраняват данните. Релационните бази данни съхраняват информацията под формата на таблици. Обект-ориентираните бази данни съхраняват данните в обектни класове и подкласове. Ние ще се съсредоточим върху релационните бази данни, тъй като те са най-често използваните. Все пак, повечето от основните топологии на базите данни включват наличието на „бекенд“ сървъри, в които се намира системата за управление на базата данни, система за съхранение на структурата и данни за базата данните, която да е прикачена към сървърите, и разбира се, компютри, лаптопи, десктопи или терминали, които да служат като интерфейс и да позволяват достъп на потребителите до базата данни, нейната система за управление и нейното съдържание. Също така се изисква мрежа за обмен между всички хардуерни компоненти и прикачен Облак, които да позволява на отдалечените потребители достъп до базата данни. На фиг. 10, по опростен и обобщен начин, са представени минималните изисквания за функционирането на една база данни.
Друг основен начин да опишем структурата на базата данни, е да представим тристепенната ѝ архитектура. На фиг. 11 е представена тази тристепенна архитектура, като са показани необходимите виртуални нива, за да може една база данни да функционира правилно. Това са нарича ANSI-SPARC модел. Въпреки че този модел никога не се е превърнал в официален стандарт, той представя широко възприетата идеята за независимост на логическите данни.
Информацията, съхранявана в релационната база данни е под формата на таблици. Тези таблици са съставени от редове от данни и всеки ред съдържа полета или колони. В една добре организирана база данни, наречена схема, във всяка таблица могат да се съхраняват само подобни данни и дублирането на колони е сведено до минимум. Разработчиците могат да свързват или да присъединяват данни от две таблици, така че да покажат връзката между различни типове информация.
Индексите могат да бъдат създавани в полетата на таблицата на базата данни, за да улесни извличането на данни от СУБД. Обикновено индексите се конфигурират за често търсени колони, такива като имена на лица или дати. Недостатък при използването на индекси е, че той заема дисково пространство и това може да забави процеса на работа, той като, ако се съхраняват твърде много индекси и при всяка актуализация на редовете, съответните индекси също трябва да бъдат актуализирани.
Повечето бази данни поддържат SQL език (Structured Query Language), който е стандартен език за взаимодействие със съдържащата се в базата данни информация. SQL позволява на потребителите и приложенията да взаимодействат със специфични подмножества от данни от една или повече таблици като използват няколко израза като “SELECT”, “INSERT”, “UPDATE” и “DELETE”.
Релационните бази данни също така осигуряват “пластов” подход при съхранението на данните, което позволява определянето на това какви обекти се намират в конкретните файлове с данни и къде файлове с данни са позиционирани във файловата структура на операционната система. Освен управление на физическото място за съхранение на обектите в базата данни, много системи позволяват контрол върху това как данните се съхраняват във файловете на базата данни.
Основни термини за база данни
Някои термини относно базата данни произтичат от начина, по който базата данни автоматично записва информацията. Разработчиците на базите данни често автоматизират записа в определени полета или други таблици, като например записване на копие от реда, които е вмъкнат – заедно с информация за времето или потребителското име – към историята или таблицата за проверка в базата данни. Повечето СУБД предлагат няколко начина за автоматично управление на записите в базата данни.
Тригерът в базата данни е най-често използвания метод за предприемане на действия с вече записани данни. Тригерите обикновено са свързани с определена таблица и са конфигурирани да се изпълняват в определен момент по време на конкретно действие по записа, такова като преди или след актуализация на данните, или след като е вмъкнат ред. Тригерите могат да се използват за форматиране на данни, попълване на колона с данни, произхождащи от налична вече информация, или дори записване в друга таблица въз основа на реда, които е вмъкнат или актуализиран.
Съхранената процедура е друг начин за взаимодействие релационната база данни. Съхранените процедури са по-комплексни отколкото тригерите и не са обвързани с конкретна таблица. Обикновено създадени от разработчиците, процедурите използват комбинации от SQL и програмен език, например Java или SQL (в зависимост от платформата на базата данни). Съхранените процедури предоставят на разработчиците голям контрол върху начина, по които данните се потвърждават или “изчистват” от определено приложение. Съхранената процедура може да бъде използвана и по отношение на начина, по които потребителят „влиза“ в приложението. Процедурата първо може да провери потребителското име и паролата, след това да регистрира проверката като успешна или неуспешна в друга таблица, заедно с информация относно името на компютъра и времето, в което е направен опита за влизане. Може да бъде изпратен сигнал до потребителя, уведомяващ го, че неговата парола изтича и трябва да бъде сменена.
Функциите са по-прости от съхранената процедура и понякога дори могат да се използват в SQL заявките. Обикновено функциите се използват в базите данни за извършване на набор от действия, които връщат като резултат една или повече стойности, например изчисляване на сума от колона за редове, които отговарят на определени условия. Въпреки че тези действия могат да бъдат извършвани с помощта на SQL, представянето им като функция може да улесни тяхното използване при наличие на друг код. Функциите и съхранените процедури могат да изпълняват общи действия по рационализиран и последователен начин, намалявайки работното натоварване на разработчиците и администраторите на базите данни.
Каква е разликата между основните СУБД?
СУБД са свързани с потребителските приложения, които трябва да поддържат. Тук е представено кратко сравнение между трите най-широко използвани платформи.
Microsoft SQL Server се използва широко от корпоративните приложения и лесно се интегрира с други инструменти на Майкрософт. Microsoft SQL Server 2019 Express е най-новата безплатна версия на Майкрософт и често се доставя с приложения, които използват SQL Server.
MySQL е любим на разработчиците, работещи с общодостъпни ресурси повече от две десетилетия. Често използван като бекенд за общодостъпни блогове или системи за управление на съдържанието, MySQL има огромна база инсталирана по целия свят. През 2008 година, MySQL AB е придобита от Sun Microsystems, която от своя страна е придобита от Oracle Corp. през 2009 год. По този начин MySQL става притежание на един от най-големи си конкуренти. Въпреки това, MySQL Community Edition остава безплатна и добре поддържана. MySQL е достъпна за множество операционни системи, включително Linux, UNIX, Mac OS X и Windows.
Oracle Database се счита от мнозина за стандарт в платформите за база данни на корпоративно ниво и поддържа множество корпоративни приложения. Oracle Database Express Edition се предлага безплатно и може да бъде разпространявана безплатно (въпреки че технически не е безплатен софтуер), което я прави друга популярна опция за разработчиците или непрофесионалистите, използващи Windows или Linux.
Сега, след като научихте основните термини и концепции относно базите данни, вие по-лесно можете да намери общ език с разработчиците на базата данни на вашата организация.
Бази данни в научната общност
Тази част е посветена на базите данни използвани в научната общност
Въведение в съществуващите бази данни, използвани в науката
Този раздел ще направи преглед на най-често използваните в науката общодостъпни бази данни.

Непрекъснатото развитие на биотехнологията и информационните технологии доведе до експоненциално нарастване на количеството данни. Изследвания проведени от учените на Европейският Биоинформационен Институт (European Bioinformatics Institute, EMBL-EBI) показват, че количеството информация ежегодно се удвоява спрямо всяко предходна година. Тези огромни количества данни се съхраняват, организират и непрекъснато актуализират в научни бази данни, където са лесно достъпни за учени, включително биолози и биоинформатици, и могат да бъдат използвани за научни цели. Наличната в биологичните бази данни информация се получава от различни научни области, включително метаболомика, микроарей генна експресия и пронеомика. Освен съхраняването, организирането и споделянето на огромни количества данни, основната цел на биологичните бази данни е да предоставя интерфейси за програмиране на уеб приложения (application programming interfaces, APIs) за компютри с цел обмен и интегриране на данни между много различни ресурси на базите данни чрез автоматизиран метод.
Биологичните бази данни могат да бъдат определени като колекции от данни, които са структурирани по такъв начин, че прави съдържанието им лесно за изследване, обработка и актуализиране. Примери за такива бази данни са представени на фиг. 12. През 1972 год. е създадена първата база данни, описваща структурата на протеините, познатата Protein Data Bank (PDB). Първоначално таза бази данни съдържала само 10 записа, като през годините те се увеличават и днес достигат до над 10 000 записа, което е свързано с и общия бърз растеж на натрупваните биологични данни. Биологичните бази данни могат да съдържат различни типове данни, в това число белтъчни секвенции, текстови описания, атрибути и таблични данни. Като цяло, те могат да бъдат разделени на първични, вторични и съставни бази данни. Първичните бази данни включват данни само за секвенцията или структурата, докато вторичните бази данни – данни, произхождащи от първичните бази данни. Данни като консервативни секвенции и остатъци от активни центрове на белтъчни семейства могат да бъдат открити в бази данни с вторична структура. Освен това, записите в PDB, която по своята същност е първична база данни, могат да бъдат открити и в бази данни с вторична структура, съхранявани по организиран начин.
Най-общо казано, биологичните бази данни могат да бъдат категоризирани в бази за секвенции, бази за структура и бази за пътища:
- Бази за секвенции: най-широко използваните биологични бази данни.Те включват бази данни за протеинови и нуклеотидни секвенции, които съдържат чисто лабораторни данни и се явяват основен източник за експериментални резултати. GenBank и EMBL са типични примери за секвенционни бази данни.
- Бази за структура: тези бази данни съдържат информация относно структурата на белтъчните молекули и молекулярните взаимодействия. PDB е пример за такава база данни.
- Бази данни за пътища: тези бази данни са базирани на данни получени от сравнителни изследвания върху метаболитните пътища.Базата данни Kyoto Encyclopedia of Genes and Genomes (KEGG) и Biocyc са две от най-известните бази данни за метаболитни пътища.
Стандартно търсене в база данни с нуклеотидни секвенции, например, може да даде информация за научното наименование на изходния организъм, от който е изолирана секвенцията, името на лицето за контакти, първоначалната секвенция с детайли за типа на молекулите, и много често литературни цитати свързани с тази секвенция.
Разработени са различни инструменти, които улесняват учените при обработката и извличането на информация от бази данни. Тези инструменти, наричани още биоинформатични инструменти, са софтуерни програми създадени за извличане на значими данни от огромния брой биологични бази данни и за провеждане на анализ на секвенции или на структура на белтъчни молекули. Биоинформатичните инструменти се използват за получаване на информация от бази данни за геномни секвенции и за визуализация, анализ и извличане на данни от белтъчни бази данни. Тези инструменти могат да бъдат разделени на:
- Инструменти за определяне на хомоложност и сходство: тези инструменти се използват за определяне на сходство между секвенции с неизвестна структура и функционалност и такива, чиято структура и функции са вече познати.
- Инструменти за анализ на функцията на протеини: програми, които се използват за сравняване на една белтъчна секвенция с вторичен (или производен) белтък, като по този начин се правят предположения за биологичната функция на заявения белтък.
- Инструменти за анализ на структурата: тези инструменти позволяват да се правят сравнения на структурата с познати структури в базите данни и установяване на 2D/3D структурата на белтъка.
- Инструменти за анализ на секвенции: програми, използвани за допълнителна, по-пълна оценка на зададената секвенция, включваща еволюционен анализ и идентификация на мутации.
Въз основа на обхвата на включените в тях данни, биологичните бази данни могат да бъдат категоризирани на:
- Общи бази данни: тези бази данни включват различни типове данни от множество видове. Примери за такива бази данни са GenBank и
- Специализирани бази данни: тези бази данни включват конкретни типове данни или данни от конкретни организми. Пример за специализирана база данни е WormBase, която съдържа информация за биологията и генома на нематоди.
По отношение нивото на биокурация, което се определя като степен на организираност, представяне и предоставяне на биологичната информация в лесно достъпна за хора и компютри форма, биологичните бази данни се разделят на първични и вторични (производни). Първичните бази данни съдържат в хранилището си необработени данни, докато вторичните, или производните, съдържат курирани данни. По отношение на метода на куриране на данните, биологичните бази данни могат допълнително да бъдат разделени на експертно-курирани бази данни и неекспертно курирани, т.е. такива курирани при съвместната работа на множество изследователи.
Допълнителна категоризация на биологичните бази данни може да се направи и въз основа на типа данни в тях. Типовете данни, използвани при класифицирането на базите данни, могат да бъдат ДНК, РНК, белтъци, експресия, пътища, заболявания, номенклатура, литература, стандарти и онтология. Някои от най-широко използваните бази данни са следните: GenBank, UCSC Genome Browser и Ensembl, които са секвенционни бази данни/портали; WormBase и The Arabidopsis Information Resource (TAIR), които са бази данни за определен моделен организъм; и PDB, Online Mendelian Inheritance in Man (OMIM), MetaCyc и KEGG, се определят като несеквенционно-центрирани бази данни.
Работата с данни е съществена част от експерименталния процес при всички видове изследвания, независимо от техния мащаб. Наличието на биологични данни онлайн съчетано с понижаване цената на автоматизираните генни секвенатори направи възможно дори малките биологични лаборатории да се превърнат в генератори на големи количества данни. Дори лабораторията да не е оборудвана с такива инструменти, тя пак може да бъде потребител на големи данни чрез получаването на достъп до обществени хранилища на биологични данни, такива като Американския национален Център за Биотехнологична Информация в Бъдезда. Голяма част от биологичната работа, свързани с големи данни, е виртуална, основава се на изчисления в облачно пространство, където данните и софтуера са разположени в масивни центрове извън обекта и могат да бъдат достъпни при необходимост. Следователно не е необходимо потребителите да закупуват собствен хардуер. Облак-базираните изчислителни системи позволяват на потребителите да създават виртуални пространства за данни, софтуер и резултати, които са общодостъпни, или да “заключват” пространствата зад защитни стени и да позволяват достъп само на определени групи сътрудници.
В някои области на изследване, използването на биологични бази данни е необходимост. Например, базите данни могат да подпомогнат експерименталния дизайн като позволяват извършването на автоматичен анализ и лесна обработка на експерименталните данни, като по този начин правят прегледа на експерименталните резултати прост и бърз. Откриването на нови лекарства е друга област, която може да бъде опростена чрез използването на бази данни. В този специфична област, базите данни могат да бъда проверени с цел откриването на нови кандидати за лекарства чрез прилагането на класификатор към набора от данни, които класификатор да идентифицира функционалните от нефункционалните лекарства. Освен това, към дизайна за виртуални анализи могат да бъдат приложени машинни техники, които да могат да идентифицират обещаващи нови лекарства, които впоследствие да бъдат анализирани в лабораторни условия. И най-важното, могат да се провеждат нови научни експерименти и да се получават нови резултати чрез анализиране на наличните вече данни.
Без наличието на бази данни, споделянето и интегрирането на големи количества данни би било практически невъзможно. Въпреки че повечето биолози притежават добри компютърни умения, по-голямата част от тях не са добре запознати с разработването и прилагането на съответния софтуер. Независимо от това, участието на биолозите в този процес е от решаващо значение, тъй като те могат да дадат на компютърните специалисти информация относно нуждите и подходите, използвани в науката. Възможността да имат достъп до актуални данни използвани в конкретно изследване, позволява на изследователите да повторят и разширят това изследване. Ето защо е важно данните да бъдат общодостъпни от всички изследователи без налагането на ограничения, становище подкрепяно от Open Science и множество свързани инициативи. Една от тези инициативи е позната като ELIXIR, проект, помагащ на учените от цяла Европа да защитят и споделят своите данни, както и да стимулира развитието на настоящите ресурси, включително базите данни и компютърни съоръжения в определени страни.
Въпреки че създаването на биологичните бази данни има много положителни страни, такива като повишаване качеството на научните изследвания чрез работа в мрежа, все още е необходимо те да бъдат подобрявани чрез оптимизиране. Важно значение има управлението на трансдисциплинарните знания по начин, който да повиши тяхното качество и количество. Хетерогенността на данните е друг често срещан проблем при интегрирането на биологичните данни. В областта на биологията съществуват различни начина за представяне на подобни данни. Това усложнява интегрирането и обработката на данните, което от своя страна затруднява създаването на единна представа за тези данни. Пример за такъв проблем е използването на алтернативни имена при назоваването на гени (независимо от наличието на пълно ръководство издадено през 1979 година, предлагащо приемането на стандарти при номенклатурата на гените), което от своя страна води до затруднения при споделянето на данни. Прилагането на стандарти позволява повторно използване на данните, тъй като липсата на стандарти води до значително намаляване на производителността и ограничаване на достъпа на изследователите. Следователно, наложително е да бъде намерено решение на този проблем с цел премахване на предизвикателствата, пред които са изправени учените в случаите, когато използват биологичните бази данни при провеждане на своите изследвания.

Заключителни коментари
Работата с данни предполага дългосрочен достъп до съхраняваната информация. Технологиите се развиват, което означава, че хардуерът и софтуерът използвани днес, може би няма да бъдат приложими утре. Това означава, че за да можем да четем всички данни записани днес, ще трябва да приложим два вида миграция – логическа и технологична миграция. Логическата миграция е свързана с формата, в който се съхраняват данните. Технологичната миграция касае хардуера, който е използван. Например, ако искате да прочетете файл записан през 1993 година на Word версия 6 като използвате по-новата версия Word 2019, това ще бъде невъзможно. Този пример показва липса на логическа съвместимост. За да бъде избегнат този проблем и да бъде запазена възходящата съвместимост, междувременно файла трябва да бъде мигриран към най-новата за момента версия с цел неговата актуализация и възможност за четене с най-новите версии на софтуера.
Същото важи и за хардуера, т.е. за сървъри, хранилища, мрежи и др. Друг пример може да бъде вида на сървъра и операционната система използвана за стартиране на базата данни. В случай че вие решите да подмените своя хардуер и да го мигрирате, да кажем от Windows към UNIX, ще бъде необходим различен тип хардуер, за да бъде стартиран UNIX и различна база данни, която да работи на UNIX. Windows работи на Intel-базирани платформи (и подобни на Intel), а Unix работи на SPARC-базирани платформи, което означава, че ще трябва да мигрирате към UNIX – SPARC съвместими версии на базата данни.
Имайки предвид тази постоянна еволюция на хардуера, операционните системи, софтуера и форматите, своевременното извършване на подходящи логически и технологични миграции би спестило много време и проблеми.
Не на последно място, важно е да архивирате своите данни. Веднъж на всеки 3 до 6 месеца правете тест за възстановяване на данните, за да проверите дали при необходимост можете да извлечете данните от своя архив. Това е от решаващо значение поради две причини:
- Ще ви помогне да възстановите данните при необходимост
Това е най-подходящият метод да проверите дали вашите данни са архивирани правилно
Тест: РО5 Основно ниво
Използвана литература
- Baxevanis AD, Bateman A. 2015. The importance of biological databases in biological discovery. Curr Protoc Bioinformatics., 50(1):1.1.1-1.1.8.
- Benson DA, Clark K, Karsch-Mizrachi I, Lipman DJ, Ostell J, Sayers EW. 2014. GenBank. Nucleic Acids Res., 42:D32–D37.
- Brooksbank C, Bergman MT, Apweiler R, Birney E, Thornton J. 2014. The European Bioinformatics Institute’s data resources 2014. Nucleic Acids Res., 42:D18–D25.
- Caspi R, Billington R, Ferrer L, Foerster H, Fulcher CA, Keseler IM, et al. 2016. The MetaCyc database of metabolic pathways and enzymes and the BioCyc collection of pathway/genome databases. Nucleic Acids Res., 44(D1):D471-80.
- Figueiredo MSN, Pereira AM. 2017. Managing knowledge – the importance of databases in the scientific production. Procedia Manuf., 12:166–73.
- Harris TW, Baran J, Bieri T, Cabunoc A, Chan J, Chen WJ. 2014. WormBase 2014: new views of curated biology. Nucleic Acids Res., 42:D789–D793.
- Howe D, Costanzo M, Fey P, Gojobori T, Hannick L, Hide W, et al. 2008. Big data: The future of biocuration: Big data. Nature., 455(7209):47–50.
- Kanehisa M, Furumichi M, Sato Y, Ishiguro-Watanabe M, Tanabe M. 2021. KEGG: integrating viruses and cellular organisms. Nucleic Acids Res., 49(D1): D545–51.
- Karp PD, Billington R, Caspi R, Fulcher CA, Latendresse M, Kothari A, et al. 2019. The BioCyc collection of microbial genomes and metabolic pathways. Brief Bioinform., 20(4):1085–93.
- Kent WJ, Sugnet CW, Furey TS, Roskin KM, Pringle TH, Zahler AM, Haussler D. 2002. The human genome browser at UCSC. Genome Res., 12(6):996-1006.
- Lapatas V, Stefanidakis M, Jimenez RC, Via A, Schneider MV. Data integration in biological research: an overview. J Biol Res (Thessalon). 2015;22(1):9.
- Marx V. 2013. Biology: The big challenges of big data: Biology. Nature., 498(7453):255–60.
- Nature Structural Biology 10, 980. 2003; doi: 10.1038/nsb1203-980
- Oliveira AL. 2019. Biotechnology, big data and artificial intelligence. Biotechnol J., 14(8):e1800613.
- Razvi SRH, Rampogu S. 2016. Bioinformatics in the present day. MOJ proteom bioinform [Internet]., 3(1):11–2. Available from: http://dx.doi.org/10.15406/mojpb.2016.03.00073
- Toomula N, Kumar A, Kumar D S, Bheemidi VS. 2012. Biological databases- integration of life science data. J Comput Sci Syst Biol., 04(05):087-092. Available from: http://dx.doi.org/10.4172/jcsb.1000081
- Yates AD, Achuthan P, Akanni W, Allen J, Allen J, Alvarez-Jarreta J, et al. 2020. Ensembl 2020. Nucleic Acids Res., 48(D1): D682–8.
- Zou D, Ma L, Yu J, Zhang Z. 2015. Biological databases for human research. Genomics Proteomics Bioinformatics., 13(1):55–63.
Обществена и политическа нагласа относно приемливостта на съвременните биотехнологични инструменти
ОСНОВНО НИВО
Биотехнологиите са модерна развита технология, основана на научни дисциплини като молекулярна биология, биохимия, клетъчна биология.
Съдържание
Съвренните биотехнологии с един поглед
Биотехнологиите са модерна развита технология, основана на научни дисциплини като молекулярна биология, биохимия, клетъчна биология. Те прилагат много нови методи, напр. култивиране на клетки и тъкани, фузия на клетки, рекомбинация на гени, микробна ферментация, както и дупликация и рекомбинация на организми на клетъчно, хромозомно и генно ниво. По този начин те могат да създават организми, отговарящи на човешките нужди, да произвеждат нови продукти и да отглеждат нови растения с нови характеристики с висока производителност и устойчивост към стрес. Съвременните биотехнологии се състоят от четири технологични системи. Това са генното, клетъчното, ензимното и ферментационното инженерство, от които генното и клетъчното инженерство са най-модерните.
Освен големите социални и икономически ползи от съвременните биотехнологии, съществува възможност те да навредят на човешкото здраве и околната среда. Това може да доведе до много социално-икономически проблеми, като например разрушаване на първоначалните социални и икономически модели, създаване на заплаха за биологичното разнообразие и традиционните сортове култури, нарушаване на социално-икономическото благосъстояние на държавите или общностите, потъпкване на традиционните етични, морални и религиозни ценности.
Съвременната биотехнологична практика при производството на влакна, фармацевтични продукти и храни претърпява мощно развитие в края на ХХ и началото на ХХІ век. Тези пробиващи си път технологии често се приемат като поредната технологична революция, притежаваща потенциала да промени фундаментално начина на обществена организация по отношение на производството и разпространението на стоки. Вече са направени значителни инвестиции в биотехнологични изследвания за разработване на нови продукти. В момента се очаква науката и технологиите да предоставят на потребителите голямо разнообразие от генетично модифицирани (ГМ) продукти. Освен това много ГМ продукти вече са влезли във веригите за дистрибуция на храни. Въпреки обещанието си да донесе значителни ползи за обществото, обществените нагласи относно приемливостта на съвременните биотехнологии са доста разнообразни в световен мащаб. За да се даде възможност на биотехнологиите да допринесат големи ползи за хората, международната общественост обръща сериозно внимание на биобезопасността на цялостното биотехнологично производство, за да насърчи по-доброто му приемане.
Практически приложения на съвременните биотехнологии
В днешни дни биотехнологиите са подразделят на няколко категории въз основа на своите приложения. Те са представени на Фиг. 1.

Обществена нагласа към съвременните биотехнологии
Като цяло биотехнологиите целят да подчертаят потенциалните ползи за обществото чрез намаляване на глада и недохранването, справяне със и излекуване на болести и повишаване на здравето и общото благосъстояние. От друга страна, има мнение, че генетично модифицираните (ГМ) продукти се използват като ненужна намеса в природата и могат да причинят неизвестни и потенциално пагубни последици. Същевременно в САЩ генетично модифицираните култури са навлезли във веригите за доставка на зърно, без да предизвикат сериозно обществено безпокойство. Освен това селскостопанските биотехнологии са изправени пред значително противопоставяне в Европа и много други развити страни. По отношение на очевидните обществени тревоги относно възприеманите рискове за хората и околната среда, Европейският съюз (ЕС) е приел доста ограничени разпоредби за всички трансгенни култури във всяка част от хранителната система на ЕС. На световно ниво ситуацията е още по-разнообразна: в Обединеното кралство опониращите движения хвърлят ГМ култури по различни поводи. Доскоро Бразилия и Индия отказваха да одобрят каквито и да било генетично модифицирани култури. Поради сходни опасения на потребителите, някои вериги за бързо хранене са решили да не използват ГМ картофи в своите продукти.
Аргументът срещу прилагането на генни технологии в селскостопанското производство се основава на факта, че някои хора и институции виждат рискове за хората и околната среда, докато други се противопоставят на това, като вземат под внимание морални, етични и социални проблеми. Биотехнологиите често губят позиции поради приложението на инструментите им при растения и животни, особено за трансфер на гени между видовете, въз основа на разбирането за „царствата Божи“ и нарушаването на „Природния закон“. Съществува и мнение, че тъй като гените са естествено срещащи се части, които са обект на откриване (не на изобретение), патентната собственост върху генетичните находки и процеси е морално и етично несъстоятелна.
Обществените дискусии относно биотехнологиите в селското стопанство също предизвикват някои социални и политически дебати. Говори се за прилагането на съвременни генетични технологии при производството на стоки в развитите страни, които в момента се внасят в развиващите се страни. Твърди се, че подобно развитие ще има значителни отрицателни ефекти върху положението с бедността в Третия свят и ще доведе до глобална нестабилност. В същото време други изследователи са на противоположно мнение. Друг източник на притеснения е възможността земеделските стопани да станат постоянно зависими от мултинационалните корпорации заради техните „средства за производство“, довеждайки до вредни икономически, социални и политически ефекти.
Значението на тази тема определя необходимостта от пълно разбиране на обществените интереси и опасения относно едно съгласие между частни и държавни решения, касаещи хранителните биотехнологии. Приемането на биотехнологиите от страна на потребителите е силно свързано не само с очакваните рискове и ползи, свързани с ГМ продуктите, но и с тяхното морално и етично измерение. Освен това обществените възгледи за мултинационалните корпорации, доверието в правителството, науката и развитието на технологиите също разкриват отношението им към биотехнологиите. Установено е, че когнитивните фактори на потребителите (например нива на избягване на риска, мнения за ГМ храни) са повлияли на приемането на ГМ хранителни продукти, докато социално-икономическите фактори не са оказали значителни ефекти. Така, обществените възприятия за биотехнологиите притежават много измерения и вероятно са засегнати от множество сили, предпочитания и събития. Например, положителните аспекти (като хранителни ползи от подобрени/нови продукти, ползи за околната среда чрез намалена употреба на пестициди и т.н.) могат да насърчат приемането на хранителните биотехнологии от страна на потребителите. От друга гледна точка, чувствителността относно рисковете за хората и околната среда се очаква да има неблагоприятно въздействие върху общественото приемане на ГМ продукти. По този начин дейностите по анализ и определяне на факторите, влияещи върху нагласите на потребителите спрямо биотехнологиите, трябва да следват процедурата, представена на Фиг. 2.
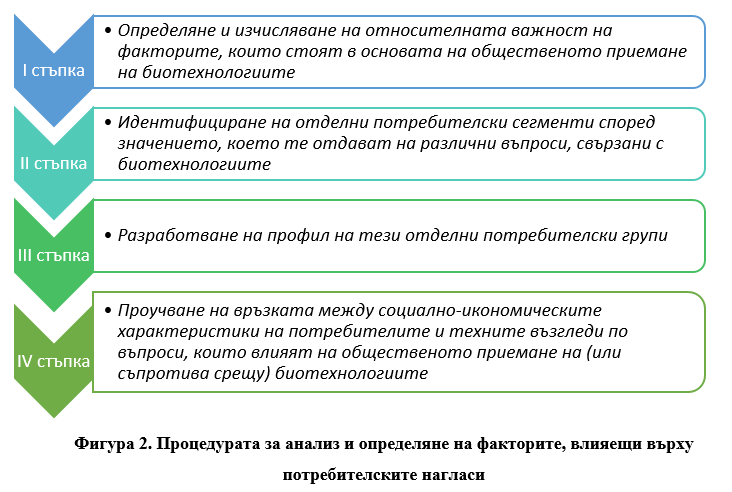
Обществено въздействие
За да се оцени въздействието на съвременните биотехнологии върху обществото, не е достатъчно то само да се измери чрез конкретни показатели. Когато акцентът е върху такива измерения като увеличаване на броя на патентите за генетично модифицирани организми (ГМО), това няма да показва динамичните сили, оформящи въздействието на биотехнологиите върху индустриалните и обществените структури. Анализът на въздействието съчетава комплексни проблеми и работи с разнообразни изходни данни, които притежават както краткосрочни, така и дългосрочни ефекти и влияят на резултатите от проблема или използването на технологии по непочтен начин. От основно значение е да се осъзнае смисълът за естеството на връзките между общества, индивиди и баланса на силите между социалните групи, изправени пред новите технологии.
Изграждане и разпространение на знания
Отправна точка е резултатът от технологичното въздействие, което зависи от изграждането и разпространението на знания. Счита се за предпочитани ценности, социални практики и норми на поведение на участващите страни в развитието и използването на биотехнологиите. Знанията се простират отвъд събирането на информация за биотехнологиите, като техники, рискове и т.н. Те също така обхващат начина, по който те се показват и коментират от отделни лица. Рискът и безопасността за обществеността не могат да бъдат анализирани по същия начин, както се прави за научния риск. За да се отчетат тези различия, е необходимо да се обясни как се създава доверие между потребителите и производителите. Накратко, такова определение на знанието дава анализ на въздействието на биотехнологиите и в по-широк план – на политиките и практиките в областта на околната среда.
От концептуална гледна точка този подход може да се третира като дискурс, основан на знанието. Полезно е да се има предвид изразяването на биотехнологичното въздействие в смисъл на образователната, социалната и политическата среда. Вземат се предвид и екологичните дискурси на биотехнологичните знания и по-конкретно – как те се изграждат, приемат, и може би най-важното, разпространяват и поддържат в обществото.
Влияние на науката и технологиите (Н&Т) върху обществото
В ЕС се води дискусия относно биотехнологиите и по-специално относно генното инженерство и въздействията, произтичащи от тази технология. Този въпрос трябва да бъде решен в тясна връзка с резултата от социалните взаимодействия. Следователно начинът на реализация на тези динамични сили трябва да отчита взаимовръзките и формата на произтичащата от това сложност между участниците.
Друг момент, който трябва да се прецени, са две основни теми при изследване на потенциалните въздействия на дадена технология. Те са: 1) непосредственото въздействие от използването и развитието на технологията и 2) рисковете отвъд технологията. Това зависи от дългосрочното ѝ прилагане и от начините да се постигне и поддържа доминираща позиция в нейното въздействие върху обществото от образователна, политическа и социална гледна точка. Това би могло да бъде поддържано като цяло чрез по-голяма загриженост относно дългосрочните последици от дейностите на Н&Т, отбелязани по-долу:
– Публикуване на образователни усилия в обществото: Извършване на интензивни усилия за присъединяване на учени, ключови лидери на общественото мнение и медии в съществуващ дебат за биотехнологиите и особено за генното инженерство. Основната цел е да се избегне информационен вакуум, който може да улесни антибиотехнологичната дейност и да генерира негативизъм в структурите на знанието.
– Роля на регулаторната политика в обществото: Фокусиране върху ефективна комуникация за риска и разбиране на факта, че общественото възприятие за риска може да бъде много различно от това на научната общност.
Обществени възприятия относно приложенията на биотехнологиите
Три основни теми се идентифицират и градят около: 1) науката, етиката и пола при възприемането на биотехнологиите; 2) международната политическа икономия, търговията и околната среда; 3) сигурността на държавата и системата и войната чрез биотехнологиите. Тези общи теми произтичат от разглеждане на международните отношения при биотехнологиите. Те предполагат концепцията за власт в Международната политическа икономия (МПИ), за да рамкират различните дискурси и сложните въпроси на технологичните въздействия. Въз основа на тези теми се разглеждат няколко показателя (Фиг. 3):
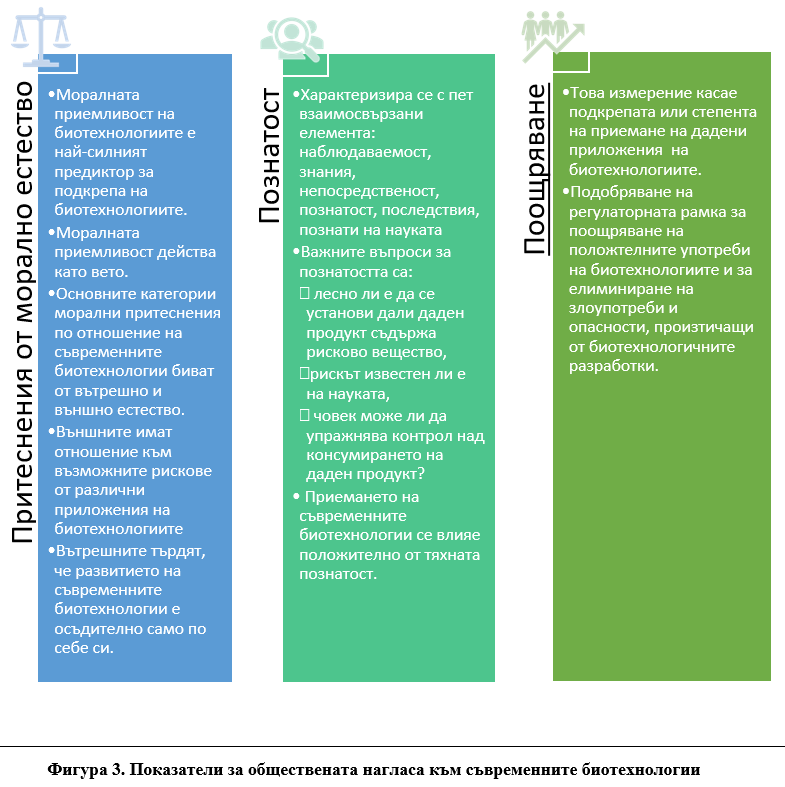
Съвременните биотехнологии се разглеждат като комплексна нововъзникваща област, която демонстрира наука на високо ниво, съчетана с ограничени познания от част от обществото. Това е свързано с отношението към естествената среда, технологичния прогрес, религиозните и моралните схващания и други. Матрица от променливи, включваща интересите на държавните сфери, като наука и политика, оптимизъм относно технологиите, социалните и културните ценности, ангажираност с въпроса за биотехнологиите и доверие в индустрията, регулации и други групи от гражданското общество – всички тези фактори допринасят за начина на представяне пред обществото и мненията за биотехнологиите (Фиг. 4). Установено е, че основните характеристики, като пол, образование, възраст и религия, също влияят на нагласите на хората.
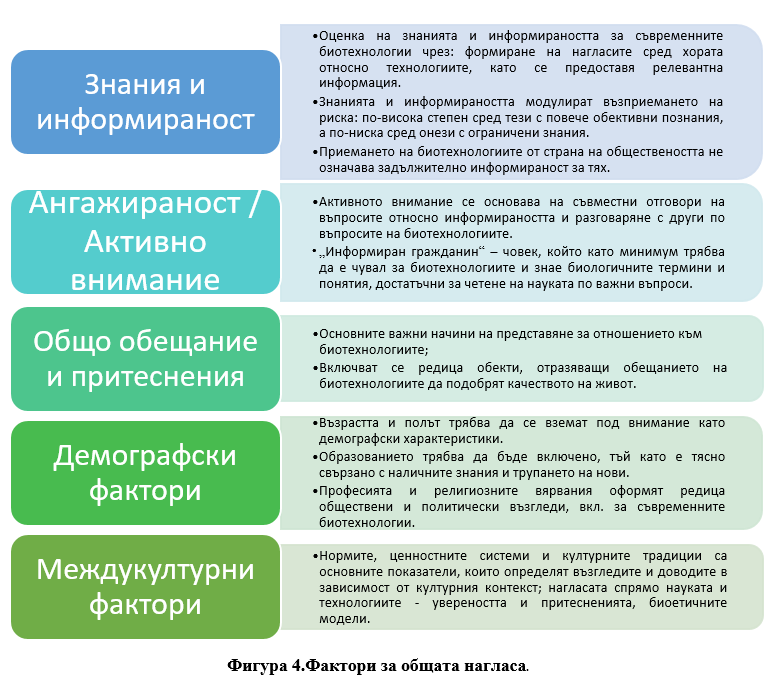
Сериозният дебат относно приемането на генното инженерство е придружен от много доказателства, които се противопоставят срещу фокусирането върху специфични приложения на технологията, отколкото срещу генното инженерство само по себе си. Изследванията показват, че нагласите на потребителите по отношение на генните трансфери се влияят от вида на трансферите. Обхватът на приемливост включва следното: 1) трансфер на гени от растения към растения; 2) прехвърляне от животно на животно; 3) животно–растение или човек–животно, като последното е най-малко приемливо.
Едно проучване на възприятието за приложенията на съвременните биотехнологии, проведено сред хора от различни страни/континенти, показва, че медицинските приложения (водещи до разработване на лекарства и ваксини и генетични тестове) са до голяма степен приемливи в сравнение с биотехнологичните приложения за храни или културни растения. Въпреки това, медицинските приложения, свързани с ксенотрансплантация или клониране на животни за производство на мляко, срещат сериозни проблеми. Азиатците, например, са по-слабо обезпокоени от медицинските генетично модифицирани продукти, отколкото от генетично модифицираните храни. Изследванията относно клонирането на човешки клетки и биоремедиацията сред европейците е поставено на междинно ниво, предполагаемо под генетичното тестване, но по-добре признато за приемливо от генетично модифицираните култури и храни.
Друго проучване съобщава, че генетичните тестове все още получават най-високата подкрепа сред европейското население, последвани от клонирането на човешки клетки, производството на генетично модифицирани ензими за екологично чисти сапуни и ксенотрансплантацията. В дъното на този диапазон попадат генетично модифицираните култури и храни. Също така, по-голяма подкрепа се дава на методите за манипулиране на бактерии за почистване на нефтени разливи, последвано от устойчиви на болести култури; след това – приложения за мазнините в месото и домати с по-добър вкус, а по-малко подкрепа получават технологиите за подобряване на производството на мляко при крави.
Потребителите в Малайзия са по-отворени към приложенията на съвременните биотехнологии, които не включват междувидови трансфери на гени, като производство на храни и генетично модифицирани култури, които засягат само трансфер на растителни гени. За тях генните модификации са по-приемливи в следния ред: 1) прехвърляне на гени от маслена палма, за да се намали съдържанието на мазнини (наситени), 2) прехвърляне на човешки гени в бактерии за производство на инсулин, 3) прехвърляне на бактериални гени в соя, за да стане устойчива на хербициди.
Отношението на един човек към дадена нова технология зависи от няколко свързани фактора, като например неговото/нейното възприемане на рисковете и ползите от нея, и социално комуникираните ценности и доверие в институциите, представляващи тези технологии. По отношение на общественото възприемане на биотехнологиите се спекулира, че отношението към генното инженерство се определя от стойността на предлаганите потенциални ползи, познанията за генното инженерство и научния мироглед, от който трябва да бъдат изключени възприетият риск (рационални притеснения) и тревогите или страховете (ирационални притеснения). Освен това трябва да се добавят различни второстепенни фактори, като например фонови фактори. Смята се, че основният ефект върху приемането изглежда се основава на нивото на знания, осъзнаване на ползите, увереност и доверие.
Изследванията на общественото отношение към биотехнологиите показват много сходства с проучванията за възприемане на риска. Някои автори са използвали психометричния подход, основан на когнитивната психология, и той е приет като най-зрялата и доминираща парадигма в изследванията за възприемане на риска. Тези психометрични методи са установени въз основа на следните възгледи:
- да представят „риска“ като субективна идея, а не като обективна;
- да включват технически/физически и социални/психологически възгледи в критериите за риск;
- да приемат мненията на „обществеността“ (т.е. на неспециалисти, а не експерти) като предмет на интерес.
По този начин общественото приемане на съвременните биотехнологии се основава на анализ на когнитивната структура на преценките за риска, като обикновено се използват многовариантни статистически процедури като факторен анализ, многоизмерно мащабиране и множествена регресия. Този психометричен подход предполага, че обществеността не възприема технологичния риск като породен от едно-единствено измерение, свързано с очакваните наранявания или смъртни случаи, близки до гледната точка на оценителя на риска, а интерпретира риска като многоизмерна концепция, свързана с по-широки качествени измерения.
Ключовите разновидности на изследването за възприемане на риска са възприеманата величина на риска или страха, приемането на риска, запознатостта с опасността и най-малко – ползата от фактора. Значението на едно друго измерение – „намесата в природата“ в проучванията за възприемане на риска в областта на генното инженерство, също е много важно.
Биотехнологиите са на границата на науката и етиката. Развитието на технологиите е свързано с етична визия, която от своя страна се формира от специфични спорни въпроси. Много биотехнологии могат да бъдат оценени по отношение на тяхната полза за човешкото общество. Но трябва да се има предвид, че биотехнологиите имат и опасна страна. Тя може да предизвика неочаквани последици, които могат да причинят вредни ефекти или да отнемат човешката същност на хората. Затова етичните въпроси на предложените ефекти трябва да бъдат внимателно проучени.
Етичната оценка на новите технологии, включително на биотехнологиите, изисква различен подход към етиката. Съществува необходимост от промени, тъй като дадена нова технология може да окаже по-дълбоко въздействие върху света поради: 1) ограничения на етичния подход, основан на правата; 2) важността и трудността на прогнозиране на последствията; 3) възможност за манипулиране на самите хора сега.
Етичните въпроси относно биотехнологиите са много различни. Поради потенциала за дълбоки промени в бъдещето на човечеството, тези въпроси трябва да бъдат внимателно обмислени. На първо място е необходимо да се формулират и предскажат отговорностите спрямо природата и другите, включително бъдещите поколения, а след това да се съсредоточи върху правата и свободите. Реалната сила и потенциал на биотехнологиите изискват силна предпазливост, за да се осигури етичен прогрес, тъй като биотехнологиите се приемат като значителна сила за подобряване на качеството на живота на хората през ХХІ век.
Биотехнологите са неразривно свързани с науката и научното познание. Но понякога се поражда допускане, че биотехнологиите са тясно свързани с етиката. И накрая, различните биотехнологични тенденции насърчават определена визия за живота, някои от които са добри за живота и заслужават да бъдат насърчавани или развивани, но други са вредни и трябва да бъдат премахнати. Тази визия влияе върху избора на хората и върху усещането им за етично подходящи биотехнологии.
Понякога връзката между биотехнологиите и етиката се описва като конфликтна точка. Веднъж се създава впечатление, че етиката е необходима само в случай че човек иска да каже на другите, че правят грешни неща. До известна степен това е ясно, тъй като обсъжданията, дебатите и споровете са общи части на консултациите по етика. Но етиката е също толкова важна в случай на консенсус, че избраният път е добър и правилен. Разбира се, няма нужда от етичен дебат, когато търсенето е лек за рак. По този начин решението за извършване на такова търсене се предвижда чрез общоприето разбиране, че за лечение на рак има етична причина. Усилията, ресурсите и творчеството, посветени на разработването на по-добри лечения, са етично приемливи и по-голямата част от тези постижения се дължат на биотехнологиите.
Ползи и рискове от приложенията на биотехнологиите
Обществената приемливост на ползите и рисковете, наложени от съвременните биотехнологични приложения, засяга:
- обществено обсъждане на ползите спрямо рисковете;
- приемане на риска като ключов елемент при възприемането на риска;
- инструменти за имерване на обществените нагласи относно рисковете и ползите: управление на риска.
Обществено обсъждане на ползите спрямо рисковете
За определяне на приемливостта на биотехнологичните приложения е много важно да се оценят възприеманите ползи и рискове. Диаграмата на Фиг. 5 ги обобщава.

Приемане на риска
Друга ключова променлива е приемането на риска, което е важно за измерване на възприемането на риска. Рядко обаче се използва при отношението към биотехнологичните изследвания. Изтъквайки тежката ситуация със съвременните технологии, те винаги са свързани с някакъв риск, който създава сериозни проблеми за обществата. Политиците разглеждат анализа на разходите и ползите като основа на методологията за вземане на решения за приемане на социалния риск. Основният въпрос, който трябва да бъде решен при анализа на съотношението риск/полза, е: дали този продукт (дейност, технология) е допустим като безопасност или доколко безопасен е достатъчно безопасен? Два са основните подходи за извършване на анализ на рисковете и ползите (Фиг. 6).

Управление на риска
Управлението на риска е процесът, който има за цел да намали ефекта и да балансира начина, по който хората реагират на него. Ако искаме да отблъснем всички рискове, това не е осъществима цел. Хората с готовност поемат рискове, изпълнявайки широк спектър от дейности. Следователно въпросът за приемливия риск не е изцяло технически; неговият отговор зависи от ценностите. Опростено казано, възможно е да се определи прост праг за приемлив риск, например – риск от един на милион през целия живот. Всички дейности, по-рискови от този праг, са „неприемливи“, както и всички по-малко рискови са „приемливи“.
Има обаче две причини, поради които този подход не работи. Първата е свързана с гореспоменатото възприемане на риска. Хората не реагират просто на риск; приемливостта на риска в съзнанието на обществеността не е просто въпрос на предполагаемите фатални неща, а включва и други елементи на дейността. Например, дали дейностите се предприемат доброволно; дали процесът, водещ до риск, е нов/стар или познат; дали процесът предизвиква интуитивна, емоционална реакция на страх или не. Ето защо, за да се дефинира приемлив риск, трябва да бъдат включени описаните по-горе процеси на съобщаване на риска и ангажираност. Във втория случай някои дейности са от съществено значение и трябва да бъдат изпълнени дори ако причиняват относително високи рискове.
Освен това може да има и други случаи, при които съществуват евтини алтернативи за извършване на по-малко рискови или модифицирани дейности. Тогава рискът може да бъде добре предвиден като неприемлив поради готовите алтернативи. Това е икономически въпрос, който се занимава с няколко ресурса, предназначени за намаляване на риска. Освен икономическите проблеми, рисковете е възможно да се разглеждат не по отношение на абсолютните стойности, а на вътрешните различия между алтернативите.
Много често обаче не е възможно напълно да се избегне рискът; по-скоро човек трябва да избира между различни рискове. Следователно не съществува определен приемлив праг на допустимия риск, както и няма единна удобна монетизирана стойност за намаляване на риска. Желанието на обществото да инвестира в намаляване на риска зависи от широк спектър от фактори, които управляват възприемането на риска, като страх, свързан с риска, неговия катастрофален потенциал и т.н.
Обществени ползи от съвременните биотехнологии
Биотехнологиите се използват широко в такива области като медицината и хигиената, селското стопанство, горското стопанство, развъждането, рибарството, енергийната и химическата промишленост, металургичната и минната промишленост, хранителната и леката промишленост, опазването на околната среда. Съвременните биотехнологии постепенно демонстрират огромния си потенциален принос към производителността, макар че имат кратко минало от само няколко десетилетия насам. Съвременните биотехнологии ще се превърнат в мощно средство за намаляване на световните ограничения в областта на храните, здравето, енергията, ресурсите и околната среда. Развитието и прилагането на съвременните биотехнологии ще засегнат в дълбочина хората и обществото за дълъг период от време.
Биотехнологичните индустрии вероятно ще се превърнат във водещите индустрии през ХХІ век. Например, сортове култури, произведени чрез биотехнологии, с нови признаци на висока производителност и устойчивост на стрес (засушаване, студ, засоляване и т.н.), се очаква не само да увеличат производството на зърно, но и да намалят използването на селскостопански химикали (като пестициди , хербициди и торове), което ще бъде полезно за околната среда. По отношение на медицината и хигиената, редица лекарства, като ДНК ваксини, медикаменти, създадени чрез протеиново инженерство, моноклонални антитела, лекарства на основата на антисенс РНК, са разработени от биотехнологиите. Трансгенните животни и растения, произвеждащи някои видове лекарства (като ваксини и хормони), могат да помогнат за намаляване на заболяванията в процеса на ежедневното хранене. Проектът за секвениране на човешкия геном (HGP) и изследването на някои гени, свързани с болести, ще разкрият генетичните причини за някои заболявания. В момента замърсяването на околната среда се влошава, но реакторите за биологична трансформация, създадени от биотехнологиите, обещават да абсорбират замърсители или отпадъци и да ги разлагат до материали с ниска или никаква токсичност.
Следователно, в днешното общество, характеризиращо се с наукоемки индустрии, държавите по целия свят, особено индустриализираните, приемат биотехнологиите сериозно. Големи количества работна ръка и финансови ресурси се разпределят за научни и развойни дейности в областта на биотехнологиите. Съставят се съответни стратегии и политики за развитие и се създават механизми за подкрепа, за да се стимулира развитието на биотехнологиите.
Приемане и разпространение на съвременните биотехнологии
Въпреки че общественото отношение или възприятие относно биотехнологиите е изследвано много и някои учени са се опитвали да идентифицират фактори, предсказващи отношението, използвайки или регресия, или корелация, проучванията, които се опитват да конструират структурен модел, предвиждащ отношението към биотехнологиите, са ограничени.
Първият документиран модел е разработен от Kelley (1995), като предлага структуриран начин за одобрение на генното инженерство сред австралийците (Фиг. 7). По-късно Pardo et al. (2002) представят друг модел за обяснение на европейското отношение към биотехнологичните приложения. Кели установява, че одобрението на генното инженерство се предвижда главно от селскостопански и здравни цели (благоприятни аспекти). От друга страна, научните и генноинженерните познания не предвиждат одобрение. Демографските променливи също не повлияват пряко одобрението на генното инженерство (техните ефекти не са статистически достоверни). Установява, че полът влияе върху знанието и научния мироглед, докато възрастта влияе върху знанията, целта и научния мироглед, като по този начин оказва много слаб (косвен) ефект върху одобрението. Образованието оказва голям ефект върху знанията, но не и по отношение на нагласите. Професията и религията нямат никакъв ефект върху нито една от междинните променливи. Зелените поддръжници са по-слабо благосклонни по отношение на генното инженерство (отрицателен пряк ефект върху одобрението на генното инженерство) в сравнение със симпатизантите на Лейбъристката коалиция (политически).
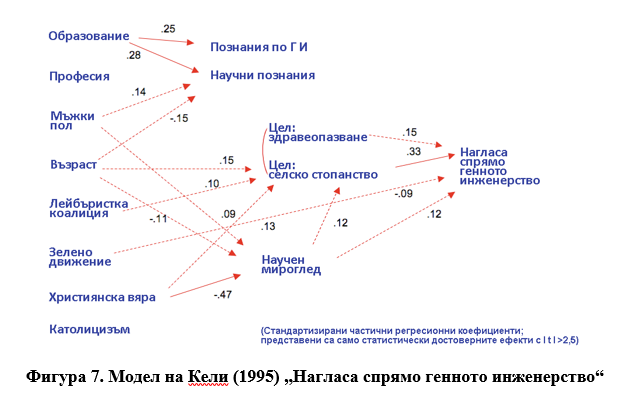
Често се смята, че биотехнологиите са технологията за дълбока трансформация на икономиката и обществото. Следвайки тези становища, развитието и прилагането на биотехнологиите имат значителен потенциал за мащабни икономически, социални и екологични въздействия. Ето защо биотехнологиите са от стратегическо значение за икономиките, основани на знанието, и техните правителства. Нациите, които не съумяха да развият биотехнологични възможности, не успяват да осъзнаят икономическите въздействия.
Приложенията, свързани с биотехнологиите, са се разпрострели в няколко много различни индустриални сектора, например производство на храни, довършителни работи на текстил, целулоза и хартия, селско стопанство, производство на електроенергия, химикали и нефтохимикали и фармацевтични продукти. Продуктите, произведени от тези сектори, обикновено не отразяват разликата между алтернативните производствени процеси. По този начин за много продукти би било необходимо да се прави разграничение между биотехнологичните и конвенционалните (например химически) производствени процеси, както и въвеждането на някои нови. Освен това биотехнологиите са динамично поле и някои биотехнологични методи на производство вероятно скоро ще бъдат преразгледани и ще се появят напълно нови продукти. Текущата официална статистика и проучванията на съществуващите компании могат да предоставят специализирана информация за разпространението на биотехнологичните приложения и тяхното икономическо въздействие. Данните непрекъснато се обновяват и се извършват различни технико-икономически проучвания, за да се осигури бъдеща производствена прогноза и сценарии. Прилагайки комбинация от методи и източници, те често се фокусират върху експертна преценка, казуси и различни статистически данни.
Алтернатива на измерването на разпространението на биотехнологиите, използвани в големите производствени сектори, е концепцията за продажби, свързани с биотехнологиите (англ. biotechnology-related-sales, BRS). Проучванията до момента са използвали различни подходи за измерване (определяне на нивото на агрегация на биотехнологиите, изследвани сектори, предположения за сценарии и др.). Освен това, за да се оцени въздействието на разпространението на биотехнологиите, е въведен модел на входящо производство и съответни показатели за изследване на неговия ефект върху заетостта. Моделът изследва на сравнителен принцип как биотехнологиите влияят върху основните сектори на приложение. Той сравнява проникването на пазара през 2004 и 2020 г. чрез скоростите на разпространение, измерени с горни и долни граници. Този подход помага да не се надценява въздействието на биотехнологиите, като същевременно се улавят определени иновативни биотехнологични приложения. Данните от това проучване показват почти сходен модел на разпространение във фармацевтичните продукти, преработката на храни и селското стопанство. Очаква се разпространението да се увеличи значително във всички сектори до 2025 г., както се вижда от навлизането на определени групи продукти. Беше показано обаче, че има сериозно ниво на подозрение относно разпространението на биотехнологиите; очакванията за 2025 г. са много несигурни. Анализът на тази тенденция показва, че има пречки, възпрепятсващи разпространението, посочени на Фиг. 7.
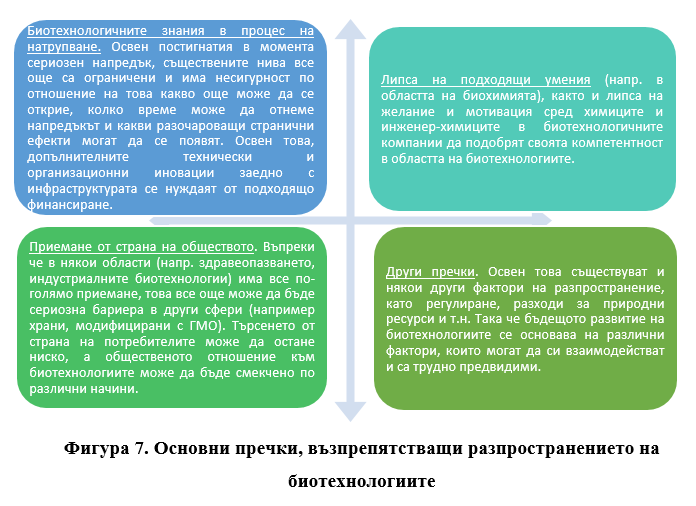
Възможни негативни въздействия на съвременните биотехнологии
Социално-икономически въздействия
Мотивирани да възприемат голяма икономическа печалба, много известни международни бизнес корпорации направиха значителни инвестиции на капитал в НИРД на биотехнологиите и по този начин променят предишните световни социални и икономически тенденции. Такъв пример е компанията Monsanto (по-рано намираща се в САЩ, а сега част от глобалния консорциум BASF). Традиционно работеща в химическата промишленост, след 1985 г. компанията направи сериозни пренареждания на бизнеса, инвестира в 3 биотехнологични сектора и се превърна в основен консорциум, занимаващ се с научноизследователска и развойна дейност в областта на биологията. След 1998 г. около 20 милиона хектара ниви по целия свят бяха засадени с ГМ семена на Monsanto. Скоро след това Monsanto направи напредък на международния пазар на семена за култури чрез напълно интегрирана система за търговия с ГМ семена и селскостопански химикали. По този начин Monsanto получи контрол върху голяма част от хранителната верига на човешкото население, като направи огромна печалба, хранейки го с ГМ култури. Ето пример за това как в съвременния глобализиран свят се появява възможност няколко мултинационални корпорации да вземат решение относно консумацията на храна от хората.
При употреба в млечни продукти на говежди растежен хормон (BGH), произведен чрез генно инженерство, млечността на млечната крава може да се увеличи с 30 %, което означава 10 % по-малко разход на фураж. Така че резултатът е много впечатляващ за млечната индустрия.
Голям брой лекарства, като ваксини за лечение на малария и холера, се предоставят на пациентите чрез нови антигени, синтезирани чрез съвременни биотехнологични методи. Те карат процентите на заболяванията и смъртността в много страни (особено в развиващите се) да намаляват бързо, което съвпада с темповете на растеж на населението. В този контекст възниква въпросът за въздействието върху и без това недостатъчната икономика и инфраструктура на посочените държави.
Въздействия върху биоразнообразието и устойчивото селско стопанство
Редица ГМ култури съдържат чужди гени от други растения, животни и микроби. Всички тези чужди гени могат да бъдат прехвърлени в други растения в природата чрез полените на генетично трансформирани растения и ще причинят замърсяване на естествения генофонд. Следователно, прогнозираната опасност за природните ресурси е сериозна, тъй като по-голямата част от трансгенните растения притежават икономически полезни характеристики, като висока производителност, устойчивост на болести-вредители, устойчивост на стрес, а фермерите са привлечени от икономически интереси да отглеждат тези растения, а не традиционните сортове култури. Също така, технологиите за отглеждане на монокултура от даден сорт в някои области могат да увеличат загубата на биологично разнообразие. Така че в дългосрочен план това влошаване на генетичната основа може да намали естествената устойчивост на растенията към болести и вредители от насекоми и това да доведе до намаляване на добивите на културите. По този начин може да се компрометира глобалното устойчиво развитие.
Bacillus thuringiensis (Bt) е почвена бактерия, която се използва за синтезиране на токсин срещу насекоми в самите растения. Използва се като микробен пестицид в продължение на много години, а гените, кодиращи тези инсектицидни токсини, могат да бъдат въведени в клетките на много култури, като памук, соя и рапица, за да се създадат растения, устойчиви на вредители. В този случай експертите по опазване на околната среда и организацията „Грийнпийс“ са обезпокоени от факта, че производството на токсини се осъществява в късния жизнен цикъл на трансгенните растения и има възможност за повишаване на обичайната устойчивост на вредителите към Bt токсините . Така че тази ситуация би довела до по-голямо използване на пестициди на базата на Bt поради загуба на тяхната ефикасност, и причиняване на големи икономически загуби.
Въздействия върху общественото благосъстояние
Експлоатацията на технологиите за генно инженерство у хората би могла да улесни диагностицирането и излекуването на някои заболявания с генетична основа, като някои видове рак, хемофилия и т.н. Но диагностицирането на такива гени може също да окаже противоположен ефект върху перспективите за заетост и брак на тези хора. Чрез генно инженерство, животни, растения и микроби могат да бъдат превърнати в био-фабрики за производство на различни видове химикали. По този начин те могат да бъдат третирани като постоянни биологични производители, а същевременно нарастващият потенциал за последствия от продуктите може да причини социално-икономически проблеми. Да приемем, че специфични микробни щамове са проектирани да произвеждат дадено ценно вещество в голям мащаб. В такъв случай е важно да се прогнозира въздействието на това производство върху големите световни производители на същото вещество. Ако това вещество допринася за значителен процент от дохода на дадена държава, какво би било влиянието и последиците от това биотехнологично производство върху селското стопанство и финансовата инфраструктура на страната?
Спорни въпроси за биобезопасността на съвременните биотехнологии
Едно неподходящото приложение на биотехнологиите би създало много рискове, подобно на други модерни технологии. Например нововъведените гени в културните растения, създадени чрез генно инженерство, могат да предизвикат алергични реакции. Икономически важните характеристики на устойчивост към вредители, хербициди или към стрес, въведени в растенията, могат да отделят тези трансгенни гостоприемници от земеделските системи за отглеждане. Гените за устойчивост у трансгенни растения могат да бъдат прехвърлени на техни близкородствени плевели, а те от своя страна – да бъдат трансформирани до „супер“ плевели, борбата с които ще бъде много трудна. По този начин мащабните изпускания в околната среда на трансгенни култури, устойчиви на вредители, ще предизвикат сериозен еволюционен натиск за изграждане на устойчивост у целевите вредители.
Трансгенните устойчиви на вируси растения, които вече са трансформирани с чужди вирусни гени, притежават кодирани от вируси протеини, които могат да се рекомбинират с генетичния материал на други вируси, с което да се получат нови видове вируси с по-висока токсичност. Ако селективното унищожаване на целевите вредители и патогени не е възможно, трансгенните култури, устойчиви на вредители и болести, могат бързо да отровят други организми и също така да окажат вредно действие върху полезни микроорганизми, насекоми, птици и бозайници чрез хранителните вериги.
Освен това много биотехнологични продукти са живи организми и могат да се движат и възпроизвеждат сами. Веднъж изпуснати в околната среда и доказали се като токсични, тогава е почти невъзможно да се отстранят, а вредата, която създават, може да нарасне с времето, като става все по-сериозна. По този начин изпусканията на трансгенни растения в околната среда в големи количества могат да увредят естествения екологичен баланс в дългосрочен план.
Загрижеността за биологичната безопасност възпрепятства научноизследователската и развойната дейност на биотехнологиите. Обществото в много страни изразява негативното си мнение, чувство на отблъскване, дори страх по отношение на биотехнологични продукти. Това се проявява дори чрез демонстрации, стъпкване на полски култури, забраняване на вноса или изкупуване на биотехнологичните продукти. Така въпросите на биологичната безопасност се поставят на най-предна позиция в дневния ред на много страни и международни сдружения. В редица страни са формулирани закони и разпоредби относно биологичната безопасност, а проблемите на биобезопасността се разглеждат в много международни документи и договори, като Програма 21 и Конвенцията за биологичното разнообразие.
Заключение
Биотехнологиите са на път да станат от сериозна важност за икономиката и могат да придобият доста голямо значение в няколко сектора на приложение през следващите 10–15 години. Въпреки това общите ефекти на съвременните биотехнологии върху икономиката са доста разнообразни. Например оценките на заетостта показват, че увеличаването на дела на биотехнологиите в секторите на приложение и връзката им с доставчиците показват тенденция за намаляване на заетостта поради ефектите върху производителността. Икономическото значение на биотехнологиите се увеличава поради навлизането им в напълно развити производствени сектори. Разпространението в тези основни сектори на приложение обаче може да повлияе само на малки части от общата заетост. Съществено въздействие върху цялата икономика може да се прояви само ако биотехнологиите се увеличат в други сектори.
Дълбочината на биотехнологичната трансформация на икономиката силно зависи от нейния потенциал да предложи създаването на нови продукти и да подобри ефективността при производството на съществуващи такива. Следователно се очаква биотехнологиите да позволят създаването на много продукти, но потенциалът за повишаване на производителността на труда да бъде ограничен. Един важен възглед е, че биотехнологиите могат да трансформират икономиката и обществото по различен начин, като се допълват с други технологии като ИКТ. Големи стимули за такъв икономически растеж могат да се появят в комбинация с други технологии или повишаване на ефективността, които увеличават производителността и покупателната способност, за да реализират плодовете на биотехнологиите.
Тест: РО6 Основно ниво
Библиография
- Agreements on Trade-Related Aspects of Intellectual Property Rights (TRIPS) available from https://www.wto.org/english/docs_e/legal_e/27-trips.pdf
- Amin L, Hashim H, Sidik NM, Zainol ZA, Anua N. 2011. Public attitude towards modern biotechnology. African Journal of Biotechnology Vol. 10(58), pp. 12409-12417, Available online at http://www.academicjournals.org/AJB DOI: 10.5897/AJB11.1061
- Amin L. 2013. Modern Biotechnology in Malaysia (UM Press)
- Biology Online. Blue Biotechnology. http://www.biologyonline.org/kb/biology_articles/biotechnology/blue_biotechnology.html
- Gaskell G, Alum N, Baouer M, Durant J, Allansdottir A, Bonfadelli H, Boy D, Cheveigne DS, Fjaestad B, Gutteling JM, Hampel J, Jelsoe E, Jesuino JG, Kohring M, Kronberger N, Midden Holden C. 1990. Activists urge ban on herbicide R & D. Science, 247:1539.
- Horst W, Doelle J, Rokem S, Berovic M. 2019. Biotechnology – Volume XIII: Fundamentals in Biotechnology, EOLSS Publications, p 364.
- ISAAA & The University of Illinois at Urbana Champaign (UIUC). 2003. The social and cultural dimensions of Agricultural Biotechnology in Southeast Asia Report.
- Kelley J. 1995. Public perceptions of genetic engineering: Australia, Final report to the Department of Industry, Science and Technology, May 1995.
- Lorenz P, Zinke H. 2005. White Biotechnology: Differences in US and EU approaches? Trends. Biotechnol. 23(12): 570-574.
- Luscombe N, Greenbaum D, Gerstein M. 2001. What is Bioinformatics? A Proposed Definition and Overview of the Field. Method. Inform. Med. 4: 346-358.
- Miller H, Huttner S. 1998. A baroque solution to nonproblem. Nature biotechnology, 16: 698-699.
- Nielsen TH, Przestalski A, Rusanen T, Sakellaris G, Torgersen H, Twardowski T, Wagner W. 2000. Biotechnology and the European public. Nat. Biotechnol. (18): 935-938.
- O’Mathúna DP. 2007. Bioethics and biotechnology. Cytotechnology. 53(1-3): 113–119. doi: 10.1007/s10616-007-9053-8
- Pardo R, Midden C, Miller JD. 2002. Attitudes toward biotechnology in the European Union. Journal of Biotechnology 98, 9-24.
- Wydra S, Nusser M. 2011. Diffusion and economic impacts of biotechnology – a case study for Germany. Int. J. Biotechnology, Vol. 12, Nos. 1/2, 2011 87 DOI: 10.1504/IJBT.2011.042683.
Ползи за околната среда от съвременните биотехнологични и ИКТ приложения
ОСНОВНО НИВО
Последни актуализации на законодателството относно възобновяемата енергия -> Директива (ЕС) 2018/2001 на Европейския парламент и на Съвета от 11 декември 2018 г.
Съдържание
Възобновяема енергия: биотехнологията за производство на биогаз и биоетанол
Последни актуализации на законодателството относно възобновяемата енергия à Директива (ЕС) 2018/2001 на Европейския парламент и на Съвета от 11 декември 2018 г. относно насърчаването на използването на енергия от възобновяеми източници. Рамката за климата и енергетиката за 2030 г. включва общоевропейските цели и политики за периода от 2021 г. до 2030 г. Ключовите цели са:
– Намаляване на емисиите от CO2 (спрямо нивата от 1990 г.) с 40%
– Увеличаване на възобновяемите енергийни източници с 32%
– Подобряване на енергийната ефективност с 32,5%
Биогаз
Биогазът е смес от газове, получени при разграждането на органични вещества в отсъствие на кислород (анаеробно), състояща се предимно от метан и въглероден диоксид. Биогазът може да се произвежда от суровини като земеделски отпадъци, оборски тор, битови отпадъци, растителни материали, канални води, зелени отпадъци или хранителни отпадъци. Биогазът е възобновяем източник на енергия (Фиг. 1). Биогазът се счита за възобновяем ресурс, тъй като цикълът му на производство и използване е непрекъснат и не генерира чист въглероден диоксид. С нарастването на органичния материал той се преработва и използва. След това той се възстановява в непрекъснато повтарящ се цикъл. От гледна точка на въглерода, при растежа на първичния биоресурс от атмосферата се абсорбира толкова въглероден диоксид, колкото се отделя, когато материалът в крайна сметка се превръща в енергия.

Биогазът се произвежда чрез анаеробно разграждане от метаногенни или анаеробни организми, които трансформират органичните материали в затворена система, или осъществяват ферментация на биоразградими материали. Тази затворена система се нарича анаеробен танк или биотанк
Биогазът е предимно метан (CH4) и въглероден диоксид (CO2). Могат да присъстват и малки количества сероводород (H2S) и влага (Фиг. 2). След пречистване от H2S и влагата, биогазът може да се използва за производство на електрическа и топлинна енергия. По този начин, биогазът може да се използва в система ко-генератор (вид газов двигател) за преобразуване на енергията на газа в електричество и топлина.
Метанът от биогаза (след елиминиране на CO2) може да се използва като гориво и за различни отоплителни цели. Следователно, биогазът може да бъде пречистен и подобрен до стандартите за природен газ, превръщайки се в биометан.
Биогазът може да бъде произведен от голямо разнообразие от материали (суровини). Най-важна роля в процеса на производство на биогаз играят микробите, хранещи се с биомасата (виж подробности в презентацията). Материалите, които са подходящи за производство на биогаз, включват:

- биоразградими отпадъци от предприятия и промишлени съоръжения, като излишък от лактоза от производството на млечни продукти без лактоза
- развалена храна от магазините
- биоотпадъци, генерирани от потребителите
- утайки от пречиствателни станции за отпадни води
- оборски тор и полска биомаса от селското стопанство
Материалът обикновено се доставя до приемния резервоар на завода за биогаз с камион или с превозно средство за управление на отпадъците. Доставката на твърди вещества, като например био-отпадъци, след това се подлага на раздробяване, за да придобие възможно най-равномерна консистенция. На този етап, съдържащите вода хранителни вещества, получени от следващ етап в производствения процес, също се смесват със суровината, за да се намали количеството на твърдото вещество до около една десета от общия обем.

На този етап от сместа се отделят всички нежелани неразградими отпадъци, като пластмасови опаковки на негодни хранителни отпадъци от магазините. Тези отпадъци се отвеждат в съоръжение за третиране на отпадъци, където се използват за генериране на топлина и електричество. Биомасата, която е преминала през етапа на смесване до кашоподобна консистенция, се комбинира с биомасата, доставена под формата на суспензия до инсталацията за биогаз и се изпомпва в резервоара за предварително разграждане, където ензимите, секретирани от бактериите, разграждат биомасата до още по-фина консистенция. Схема на инсталация за биогаз е представена на Фиг. 3.
Остатъчните твърди вещества и течностите, генерирани при производството на биогаз, се наричат диджестат. Диджестатът влиза в реактор за пост-разграждане и след това, в резервоари за съхранение. Диджестатите са подходящи за наторяване. Диджестатите също могат да бъдат центрофугирани, за да се разделят твърдите от течните вещества.
Твърдите диджестати се използват като торове в селското стопанство или в озеленяването, а също така могат да бъдат превърнати в градинска почва чрез процес на зреене, включващ компостиране.
Диджестатите се центрофугират, за извличане на водата, необходима за смесването на био-отпадъци в началото на процеса. Това помага да се намали използването на чиста вода. Центрофугираната течност е богата на хранителни вещества, по-специално на азот, които могат да бъдат отделени допълнително с помощта на методи като технология за отстраняване и използвани като торове или хранителни източници в промишлените процеси. Метанът, който евентуално може да бъде получен от различни странични продукти/отпадъци, е показан на Фиг. 4.
Етапи в производството на биогаз. Анаеробното разграждане е многоетапен процес, при който хидролизата е една от основните стъпки. По време на хидролизата сложните неразтворими субстратни макромолекули се хидролизират от бактерии до по-прости и по-разтворими междинни съединения.

Голям брой микробни видове, действащи съвместно, са в състояние да използват органични субстрати като въглехидрати, протеини и липиди за производство на летливи мастни киселини (VFAs), които могат да бъдат превърнати в метан и въглероден диоксид от метаногенни микроорганизми. Бактериите отделят ензими, които хидролизират субстрата до малки транспортируеми молекули, които могат да преминат през клетъчната мембрана. Веднъж попаднали в клетката, тези прости молекули се използват за осигуряване на енергия и за синтеза на клетъчни компоненти. Полизахаридите се превръщат в прости захари; хидролизата на целулозата от целулазни ензими води до образуването на глюкоза; разграждането на хемицелулозата води до натрупване на монозахариди като ксилоза, глюкоза, галактоза, пентози, арабиноза и маноза, докато скорбялата се превръща в глюкоза чрез амилазни ензими. Схема на процеса и примери за микроорганизми, които участват в него е показана по-долу (Фиг. 5).

Метаногените са археи. Те могат да живеят в различни местообитания и са хетерогенна група от микроорганизми. Не притежават клетъчни ядра и следователно са прокариоти. Първоначално археите са класифицирани като бактерии, получавайки името архебактерии (в царство Archaebacteria), но този термин е излязъл от употреба. Археалните клетки имат уникални свойства, които ги отделят от другите два домена Bacteria и Eukaryota. Археите са допълнително разделени на множество признати типове. Класифицирането им е трудно, тъй като повечето от тях не са изолирани в лабораторни условия и са открити само чрез техните генни последователности в екологични проби. Археите и бактериите обикновено са сходни по размер и форма, въпреки че някои археи имат много различни форми. Въпреки това морфологично сходство с бактериите, археите притежават гени и няколко метаболитни пътища, които са по-тясно свързани с тези на еукариотите, по-специално ензимите, участващи в транскрипцията и транслацията. Други аспекти на археалната биохимия са уникални, като тяхната зависимост от етерните липиди в клетъчните им мембрани. Археите използват повече източници на енергия от еукариотите: те варират от органични съединения, като захари, до амоняк, метални йони или дори газ водород. Халотолерантните археи (Haloarchaea) използват слънчевата светлина като източник на енергия, а други видове археи фиксират въглерода, но за разлика от растенията и цианобактериите, нито един известен вид археи не извършва и двата процеса. Археите се размножават безполово чрез бинарно делене, фрагментиране или пъпкуване; за разлика от бактериите, нито един известен вид археи не образува ендоспори. Първите наблюдавани археи са екстремофили, живеещи в екстремни местообитания, като горещи извори и солени езера, без други организми. Съвременните средства за молекулярна идентификация доведоха до откриването на археи в почти всички местообитания, включително почвата, океаните и блатистите зони. Археите са особено многобройни в океаните, а археите в планктона са може би една от най-разпространените групи организми на планетата. Археите са основна част от живота на Земята. Те са част от микробиотата на всички организми. В човешкия микробиом те са важни в червата, устата и върху кожата. Тяхното морфологично, метаболитно и географско разнообразие им позволява да изпълняват редица екологични роли: фиксиране на въглероден диоксид; участие в кръговрата на азота; превръщането на органичните съединения и поддържане на микробни симбиотични и синтрофни съобщества, образуване на метан.
Широко мащабните субстрати за метаногенеза са изброени по-долу.

Фигура 6. Субстрати за метаногенеза
Биоетанол
Ще бъде направен преглед на използването на биоетанол в Европа, основните микроорганизми, използвани за производството на биоетанол (дрожди и бактерии) и техните характеристики в сравнителен аспект.

Фигура 7. Производство на етанол vs био-етанол
Етанолът се използва широко като разтворител, реагент в хранително-вкусовата промишленост и като автомобилно гориво (Фиг. 7 и 8). Производството на етанол чрез ферментация се основава на използването на суровини, микроорганизми и технологии, различни от тези, използвани за производството на алкохолни напитки (вино и бира), за да се реализира максимален добив от етанол в най-кратки срокове и с най-ниски разходи. Деветдесет и пет процента от действителното производство на етанол в света е БИОЕТАНОЛ (процес на ферментация на захари), докато само 5% се произвеждат чрез химическия процес на взаимодействие на етилен с водни пари

Фигура 8. Употреба на био-етанол на пазара на ЕС
Биоетанолът е основното гориво, използвано като заместител на бензина за автомобилите. Етанолът или етиловият алкохол (C2H5OH) е бистра безцветна течност, той е биоразградим, с ниска токсичност и причинява слабо замърсяване на околната среда, ако се разлее. Етанолът изгаря с образуването на въглероден диоксид и вода. Етанолът е високооктаново гориво и е заменил оловото като октанов подобрител в бензина. Чрез смесване на етанол с бензин може също така да се окисли горивната смес, така че да изгаря по-пълно и да се намалят замърсяващите емисии. Етаноловите горивни смеси се продават широко в Съединените щати. Най-често срещаната смес е 10% етанол и 90% бензин (E10). Двигателите на превозните средства не изискват никакви модификации, за да работят на E10; гаранциите за превозните средства също не се засягат. Само превозните средства с гъвкаво гориво могат да работят с до 85% етанол и 15% бензинови смеси (E85).
Основните източници на захари, необходими за производството на етанол, се осигуряват от т.нар. горивни или енергийни култури. Тези култури се отглеждат специално за използване като енергиен източник и включват зърнени, царевични и пшенични култури (1-во поколение биоетанол), отпадъчна слама, върби и тополи, горски и селскостопански отпадъци, остатъци от производството на целулоза, твърди битови отпадъци (2-ро поколение биоетанол), и 3-то поколение биоетанол, получен от биомаса от водорасли, включително микроводорасли и макроводорасли (Фиг. 9).

Фигура 9. Първо, второ и трето поколение биоетанол
Ползите от биоетанола. Биоетанолът има редица предимства пред конвенционалните горива. Той се получава от възобновяем ресурс, т.е. растителни култури, а не от ограничен ресурс и културите, от които се добива, могат да растат добре в Европа (като зърнени храни, захарно цвекло и царевица). Друго предимство пред изкопаемите горива са емисиите на парникови газове. Пътната транспортна мрежа е отговорна за 22% от всички емисии на парникови газове и чрез използването на биоетанол, някои от тези емисии ще бъдат намалени, тъй като горивните култури абсорбират CO2, който отделят при растежа си. Също така, смесването на биоетанол с бензин ще помогне за удължаване на намаляващите доставки на петрол и за осигуряване на по-голяма сигурност на горивото, като се избягва тежката зависимост от страните – производителки на петрол. Като насърчава използването на биоетанол, икономиката на селските райони също ще получи тласък от отглеждането на необходимите култури. Биоетанолът също е биоразградим и далеч по-малко токсичен от изкопаемите горива. В допълнение, използването на биоетанол в по-старите двигатели може да помогне за намаляване на количеството въглероден оксид, произвеждан от превозното средство, като по този начин се подобри качеството на въздуха. Друго предимство на биоетанола е лекотата, с която той може лесно да бъде интегриран в съществуващата горивна система на автомобилния транспорт. В количества до 5%, биоетанолът може да се смесва с конвенционално гориво, без да се налага модификация на двигателя.
Биотанолът може да се произвежда от биомаса чрез процесите на хидролиза и ферментация на захари. Отпадъците от биомаса съдържат сложна смес от въглехидратни полимери от клетъчните стени на растенията като целулоза, хемицелулоза и лигнин. За да се произвеждат захари от биомасата, тя се обработва предварително с киселини или ензими, за да се намали размерът на суровината и да се наруши структурата на растенията. Целулозните и хемицелулозните части се разграждат (хидролизират) от ензими или разредени киселини до захароза, която след това се ферментира до етанол. Лигнинът, който също присъства в биомасата, обикновено се използва като гориво за котлите в производствените инсталации за етанол.
Има три основни метода за извличане на захари от биомаса: хидролиза с концентрирана киселина, хидролиза с разредена киселинна и ензимна хидролиза. Първият работи чрез добавяне на 70-77% сярна киселина към изсушена биомаса, съдържаща до 10% влага. Киселината се добавя в съотношение 1,25 части киселина към 1 част биомаса и температурата се контролира до 50 °C. След това се добавя вода за разреждане на киселината до 20-30% и сместа отново се загрява до 100 °С за 1 час. След това гелът, получен от тази смес, се пресова, за да се освободи киселата захарна смес и киселинната и захарната част в сместа се разделят на хроматографска колона. Процесът на хидролиза с разредена киселинна е един от най-старите, прости и най-ефективни методи за производство на етанол от биомаса. Разредената киселина се използва за хидролиза на биомасата до захароза. Първият етап включва използване на 0,7% сярна киселина при 190 °C за хидролиза на хемицелулозата, присъстваща в биомасата. Вторият етап е оптимизиран, за да се получи по-устойчивата целулозна фракция. Това се постига чрез използване на 0,4% сярна киселина при 215 °C. След това, течните хидролизати се неутрализират и изолират. Прилагането на киселинна хидролиза на биомасата до захароза може да се замени с използването на ензими за разграждане на биомасата по подобен начин.
Царевицата, един от най-използваните селскостопанските източници за получаване на етанол, може да се преработи в етанол чрез сухо смилане или чрез мокро смилане. В процеса на мокро смилане царевичния кочан се накисва в топла вода, което спомага за разграждането на протеините и освобождаването на скорбялата от царевицата и спомага за омекотяване на кочана за процеса на смилане. След това, царевицата се смила, за да се получат зародишни и скорбелни продукти и фибри. Зародишът се извлича, за да се получи царевично масло, а скорбялната фракция се подлага на центрофугиране и захарифициране, за да се получи влажна глутенова паста. След това етанолът се екстрахира чрез процес на дестилация. Процесът на мокро смилане обикновено се използва във фабрики, произвеждащи няколкостотин милиона галона етанол всяка година. Процесът на сухо смилане включва почистване и натрошаване на царевичното зърно на фини частици с помощта на механични мелници. Продуктът е прахообразна смес с консистенция на брашно. Тази смес съдържа царевичен зародиш, скорбяла и фибри. За да се получи захарен разтвор, сместа след това се хидролизира или разгражда до захароза с помощта на ензими или разредена киселина. След това, сместа се охлажда и се добавят дрожди, за да ферментира до етанол.
Ферментация на захари
Процесът на хидролиза разгражда целулозната част от биомасата или царевицата до захарни разтвори, които след това могат да бъдат ферментирани до етанол. Към разтвора се добавят дрожди и сместа се загрява. Дрождите съдържат ензим, наречен инвертаза, който действа като катализатор и помага за превръщането на захарозата в глюкоза и фруктоза.

Фигура 10. Ферментация на захари от дрожди
Основните характеристики на микроорганизма, който ще се използва в промишленото производство на етанол са:
– високи моларни добиви коефициенти (молове произведен етанол/молове консумирана захар)
– висока продуктивност (молове произведен етанол /време × обем на културата) mol/Lh или g/Lh
– високи добивни коефициенти (грам произведен етанол/обем култура, ≥ 120 g/L) g/L
– висока толерантност към етанол
– възможно най-ниско производство на странични продукти, получени от странични ферментации (например, глицерол)
Дрожди за ферментативно получаване на биоетанол: Дрождите играят съществена роля в производството на биоетанол, като ферментират широк спектър от захари до етанол. Те се използват в промишлени мащаби поради ценните си качества по линия на добива от етанол (> 90,0% теоретичен добив), толерантност към етанол (> 40,0 g/L), производителност на етанол (> 1,0 g/L/h), растеж на прости, евтини среди и неразреден ферментационен бульон с резистентност към инхибитори и забавяне на замърсителите от условията на растеж. Като основен компонент на ферментацията, дрождите влияят върху количеството и добива на етанол. Saccharomyces cerevisiae е най -широко използвания дрождеви представител. От хилядолетия S. cerevisiae се използва в производството на алкохол, особено в пивоварната и винената промишленост. Този вид поддържа ниски разходи за дестилация, тъй като дава висок добив на етанол, висока производителност и издържа на висока концентрация на етанол. В наши дни дрождите се използват за получаване на горивен етанол от възобновяеми енергийни източници. Някои щамове дрожди, принадлежащи към вида Pichia stipitis, S. cerevisiae и Kluyveromyces fagilis, са докладвани като добри производители на етанол от различни видове захари. S. cerevisiae проявява толеранс към широк диапазон на рН, което прави процеса по-малко податлив на контаминация. Хлебните дрожди традиционно се използват като стартерна култура при производството на етанол, поради ниската си цена и готова наличност. Въпреки това, хлебните дрожди и други щамове S. cerevisiae не успяват да се конкурират с дрождите от див тип, които са контаминанти по време на промишлените процеси. Стресови условия като повишаване на концентрацията на етанол, температура, осмотичен стрес и бактериално замърсяване са причините, поради които дрождите не могат да оцелеят по време на ферментацията. Флокулентни дрожди също се използват за ферментационно производство на етанол, тъй като улесняват постферментационната обработка по време на процеса, позволяват работа при висока плътност на клетките и реализират по-висока обща продуктивност. Това намалява разходите за изолиране на клетките, тъй като те се отделят лесно от ферментационната среда без центрофугиране. Съществуват общи предизвикателства пред дрождите по време на ферментацията на захарите, като повишаване на температурата (35-45 °C) и концентрацията на етанол (над 20%). Скоростта на растеж на дрождите и метаболизма се ускоряват с повишаване на температурата до достигането на оптимална стойност. Повишаването на концентрацията на етанол по време на ферментацията може да причини инхибиране на растежа и жизнеспособността на микроорганизмите. Неспособността на S. cerevisiae да расте в среда, съдържаща високо ниво на алкохол, води до инхибиране на производството на етанол. Другите проблеми при ферментацията на биоетанол от дрожди са свързани със способността им да ферментират пентози. S. cerevisiae е най-често използваният представител в производството на биоетанол. Той обаче може да ферментира само хексози, но не и пентози. Само някои дрожди от родовете Pichia, Candida, Schizosaccharomyces и Pachysolen са способни да ферментират пентози до етанол. Ефективността на производството на етанол в промишлен мащаб ще се увеличи чрез използване на дрожди, които са толерантни към инхибиторите. Общите предизвикателства на дрождите могат да бъдат преодолени, като се използват устойчиви на етанол и термотолерантни дрожди. Щамовете, устойчиви на етанол и термотолерантните такива, които издържат на стресови условия, могат да бъдат изолирани от природни източници като почва, вода, растения и животни. Етаноловата ферментация при висока температура е полезен процес, тъй като селекционира термоустойчиви микроорганизми и не изисква разходи за охлаждане и целулаза. Например, К. marxianus е термотолерантен дрождеви вид, който е способен да коферментира както хексозна, така и пентозна захар и може да оцелее при температура от 42-45 °C.
Zymomonas mobilis за ферментивно получаване на биоетанол: Zymomonas mobilis е Грам-отрицателна, факултативна анаеробна, неспорулираща, пръчковидна бактерия с единичен, полярно разположен флагелум. Това е единственият вид от рода Zymomonas. Той има забележителни способности за производство на биоетанол, които надминават дрождите в някои аспекти. Първоначално е изолиран от алкохолни напитки като африканското палмово вино, мексиканско пулке, а също и като замърсител на сайдер и бира (болест на сайдер и разваляне на бира) в европейските страни. Zymomonas mobilis разгражда захарите до пируват, използвайки пътя на Ентнер-Дудеров. След това, пируватът се ферментира, за да се получат етанол и въглероден диоксид като единствени продукти (аналогично на дрождите). Предимствата на Z. mobilis пред S. cerevisiae по отношение на производството на биоетанол са:
- по-голямо усвояване на захари и добив на етанол (до 2,5 пъти по-висок),
- по-ниска продукция на биомаса,
- по-висок толеранс към етанол, до 16% (v/v),
- не изисква контролирано добавяне на кислород по време на ферментацията.
Въпреки тези привлекателни предимства, няколко фактора възпрепятстват търговската употреба на Z. mobilis в производството на етанол от целулоза. Най-голямото препятствие е, че неговият субстратен диапазон е ограничен до глюкоза, фруктоза и захароза. Z. mobilis от див тип не може да ферментира С5 захари като ксилоза и арабиноза, които са важни компоненти на лигноцелулозните хидролизати. За разлика от Е. coli и дрождите, Z. mobilis не е толерантен към токсични инхибитори, присъстващи в лигноцелулозните хидролизати като оцетна киселина и различни фенолни съединения. Концентрацията на оцетна киселина в лигноцелулозни хидролизати може да достигне до 1,5% (w/v), което е доста над прага на толерантност на Z. mobilis. Генетично конструиран Z. mobilis би могъл да преодолее присъщите му недостатъци и следователно, да разшири обхвата на субстратите си, за да включи C5 захари като ксилоза и арабиноза. Устойчиви на оцетна киселина щамове на Z. mobilis са разработени чрез рационални методи на метаболитното инженерство, техники на мутагенеза или адаптивна мутация. Нещо повче, използван е екстензивен процес на адаптация за подобряване на ферментацията на ксилоза в Z. mobilis. Чрез адаптиране на щам във висока концентрация на ксилоза настъпват значителни промени в метаболизма му. Една забележима промяна е намалените нива на ксилитол, страничен продукт от ксилозната ферментация, който може да инхибира метаболизма на ксилозата в щама. Интересна характеристика на Z. mobilis е, че цитоплазмената му мембрана съдържа хопаноиди, пентациклични съединения, подобни на еукариотни стероли. Това му позволява да има изключителна толерантност към етанола в околната среда, около 13%.
Сравнение между производството на биоетанол от S. cerevisiae и Z. mobilis е показано на Фиг. 11.

Фигура 11. Сравнение между различните микробни агенти, отговорни за ферментационното получаване на биоетанол
Биотехнология за ремедиация на замърсени места
Отпадъчни води

Фиг. 12. Наличие и употреба на сладка вода
Водата е ресурс, който трябва да бъде защитен. Вижте по-долу основните резервоари на сладка вода на земята и някои от причините те бавно да намаляват. Почти 70 % от водата днес се консумира за селското стопанство, около една четвърт е за търговска употреба, а приблизително 10 % се използват за битови нужди. Следователно, основният сектор, който използва вода, е селското стопанство/земеделието. Водата за селскостопански нужди се използва главно за напояване, както и за пестициди и торове и за животновъдство. Има три източника на селскостопански води: i) подземни води от подземни кладенци; ii) повърхностни води, получени от отворени канали, потоци, канавки за напояване и отклонения от резервоари; iii) дъждовна вода, която обикновено се събира в бъчви, вани и големи цистерни. Водата често се отравя. Основните причини за отравянето са: битова употреба на вода (органични вещества, повърхностно активни вещества …), селско стопанска и промишлена употреба на вода (торове и пестициди, вода, получена от промишлени процеси), атмосфера (замърсяване на дъждовната вода с токсични вещества, присъстващи в атмосферата, с произход от индустрия, самолети, двигатели на моторни превозни средства).
Директива 2000/60/ЕО на Европейския парламент определи рамка за действия на Общността в областта на водната политика. Това законодателство установява рамка за защита на повърхностни води във вътрешността на континентите, крайбрежните води и подземните води. Целите на директивата са:
– защитата срещу по-нататъшно влошаване;
– подобряване на състоянието на екосистемите;
– насърчаване на устойчивото потребление на вода;
– намаляване на замърсяването на подземните води;
– намаляване на изхвърлянията;
– смекчаване на последиците от наводнения и суши.
Очистването на отпадъчните води се осъшествява чрез различни пречиствания, които често се прилагат в последователност: първично, вторично (биологично), третично третиране, както е показано на схемата) (Фиг. 13 и 14).
Фигура 13 (горе ) и 14 (долу). Първично, вторично и третично третиране за биологично очистване на отпадъчните води


Третирането с активна утайка е един от най-често използваните процеси за вторично пречистване на отпадъчни води с битов и промишлен произход. Това е процес на биологично пречистване със суспензионен растеж, използващ микробна култура с висока плътност в суспензия за биоразграждане на органичен материал при аеробни условия и спонтанно образуване на биологични флокули (наречени активна утайка). Дифузното или механично аериране поддържа аеробната среда в реактора. Типичните времена на задържане са 5-14 часа в конвенционалните танкове, като се увеличават до 24-72 в системите с ниска скорост. Процесът на третиране с активна утайка зависи от аеробното биологично действие (Фиг. 15). Микроорганизмите разграждат сложните органични съединения до прости молекули, включително вода и CO2. Този процес води до отстраняване на разтворими и суспендирани органични вещества от отпадъчните води. Растежът на микроорганизми в присъствието на разтворен кислород премахва по-голямата част от замърсителите; от своя страна протозоите растат и се хранят с тези организми. Полученият баланс е от жива култура в суспензионна форма в активните утайки. Основните елементи на системата включват резервоар за аерация (вторично пречистване), в който отпадъчните води се смесват старателно с непрекъснато активирана утайка и кислород. От тук процесът преминава в резервоар за избистряне (вторично утаяване), където утаената утайка се отстранява от пречистената вода, за да се рециклира чрез възвратните помпи за активна утайка. За да работи тази система, трябва да бъдат изпълнени две изисквания: устройството за аерация трябва да може да пренася както кислород от атмосферата към течността, така и да разпределя този кислород през отпадъчните води към суспендирания жив микроорганизъм. Този тип система е подходяща за отпадъци с ниска якост, обикновено от порядъка на 50-200 mg L-1 БПК. Може да се приложи и предварително или последващо пречистване на отпадъчните води. След аерационния резервоар сместа от микроорганизми и отпадъчни води (смесен разтвор) се влива в утаяващ се басейн или утаител, където утайката се оставя да се утаи. Част от обема на утайката непрекъснато рециркулира от утаителя като Върната Активна Утайка обратно в аерационния резервоар, за да се гарантира, че в резервоара за аерация се поддържат подходящи количества микроорганизми. Микроорганизмите отново се смесват с входящите отпадни води, където се реактивират, за да консумират органични хранителни вещества. След това процесът започва отново.
Процесът на третиране с активна утайка при подходящи условия е много ефективен. Той премахва 85 до 95 процента от твърдите вещества и намалява биохимичното потребление на кислород (БПК) за приблизително същото количество. Ефективността на тази система зависи от много фактори, включително климата и характеристиките на отпадъчните води. Токсичните отпадъци, които попадат в системата за пречистване, могат да нарушат биологичната активност. Отпадъци, съдържащи големи количества сапуни или детергенти могат да причинят прекомерно образуване на пяна и по този начин да създадат естетически проблеми. В райони, където се комбинират промишлени и отходни отпадъци, промишлените отпадъчни води често трябва да бъдат предварително пречиствани, за да се отстранят токсичните химични компоненти, преди да се заустят в процеса на третиране с активна утайка. Независимо от това, микробиологичното пречистване на отпадъчните води е най-естественият и ефективен процес за отстраняване на отпадъците от водата.
Микробни популации в активни утайки: Микробното съобщество, участващо в процеса на биологично пречистване, образува флокулни агломерати, които се наричат активни утайки. Активната утайка на вторична пречиствателна станция е микробна култура, която се развива около органични и неорганични частици и метаболизира органичното вещество, присъстващо в отпадъчните води. Флокулите с активна утайка са склонни да се утаяват във „вторичната“ фаза на утаяване поради гравитацията. Няколко групи микроорганизми са отговорни за процеса на прeчистване:

Бактериите са основно отговорни за отстраняването на органичните хранителни вещества от отпадъчните води. Те също така образуват лепкав слузест слой около клетъчната си стена, който им позволява да се слепват заедно, за да образуват био-твърди вещества или утайки, които след това се отделят от течната фаза. Успешното отстраняване на отпадъците от водата зависи от това колко ефективно бактериите консумират органичния материал и от способността на бактериите да се слепват, да образуват флокули и да се утаяват от течността. Способността за флокулиране (натрупване) на инактивираната утайка от микроорганизми им позволява да се натрупват, за да образуват твърди маси, достатъчно големи, за да се утаят на дъното на утаяващия се басейн.
ГЪБИТЕ също са хетеротрофни организми, подпомагащи разграждането на органичните вещества.
Протозоите играят решаваща роля в процеса на третиране, като премахват и усвояват свободно плуващи бактерии и други суспендирани частици. Това подобрява прозрачността на отпадъчните води. Подобно на бактериите, някои протозои се нуждаят от кислород, някои се нуждаят от много малко кислород, а някои могат да оцелеят без кислород. Типовете протозои са класифицирани, както следва:
Амеби à Слаб ефект върху третирането и отмиране с намаляване на количеството храна
Флагелати à Хранене предимно с разтворими органични хранителни вещества
Цилиати à Избистрят водата чрез отстраняване на суспендирани бактерии.
Ротиферите и нематодите са многоклетъчни организми, които са по-големи от повечето протозои и не отстраняват основно органичния материал от отпадъчните води. Въпреки че могат да се хранят с бактерии, те също се хранят с водорасли и протозои. Доминация на метазоите обикновено се среща в системи с по-продължително функциониране; а именно системите за пречистване на лагуни. Въпреки че техният принос в системата за третиране на активна утайка е малък, тяхното присъствие е индикатор за състоянието на системата за пречистване.
В допълнение към инсталациите за активна утайка има и други видове вторични процеси на пречистване на отпадъчни води. Някои от тях могат да бъдат ПРОЦЕСИ С ИМОБИЛИЗИРАНИ КЛЕТКИ, както е посочено на Фиг. 16.

Фигура 16. Технологии за експлоатация на отпадъчни води с имобилизирани клетки
Перколационните филтри са технология за биологично пречистване чрез микроорганизми, които се развиват в аеробна среда върху подходящи поддържащи материали, през които се просмукват канализационните води. Перколиращият филтърен резервоар се пълни с инертни, естествени или синтетични материали (например, камъни), през които се подават отпадъчните води от по-горе. ЕТАПИТЕ НА ПРЕЧИСТВАНЕ включват: 1) Първично третиране за предотвратяване на запушване на леглото; 2) Образуване на биофилма (с дебелина 3-4 мм); 3) Отделяне на клетки от биофилма и поставянето му обратно; 4) Крайна утайка. Основните предимства на тази технология са ниските разходи за настройка и поддръжка и факта, че те могат да понасят промяна в органичното натоварване на входящия поток. Основните недостатъци включват големите площи за настройка и проблема с лошите миризми. Биодисковете са модифицирана версия на перколиращите филтри, при които повърхностите, носещи биофилма, се въртят около оста си, наполовина потопени в течността, която ще се обработва; въртенето позволява окисляването на биомасата, залепнала върху диска. Анаеробните системи работят добре, когато входният дебит е нисък и органичният товар, постъпващ в системата, е достатъчно висок. Необходимата ефективност на пречистването не е висока (анаеробните микроорганизми се характеризират с по-ниска скорост на растеж и по-бавен метаболизъм в сравнение с аеробните, така че органичното вещество не се разгражда напълно). Тези условия са типични за някои промишлени отпадъчни води; анаеробните реактори не работят добре за пречистване на мащабни битови отпадъци.
Друга важна система за пречистване на отпадъчните води е фитодепурацията (Фиг. 17), която е: технология на пречистване, характеризираща се с биологично третиране, при което растенията, растящи в наситена с вода почва, играят ключова роля, подпомогната от директното действие на бактериите, които колонизират кореновата система и подложката. Тези третирания се разглеждат както като алтернатива, така и в подкрепа на традиционните системи, базирани на биологични процеси и химични и физични реакции. Терминът „влажни зони“ обозначава системите за „фитодепурация“ на отпадъчни води, предназначени да създават изкуствено същите екологични условия, които естествено се установяват във водни райони. Системите за „фитодепурация“, са проектирани и изградени за възпроизвеждане на естествени самопочистващи процеси в контролируема среда. В сравнение с естествените влажни зони, системите за фитодепурация позволяват избор на мястото, гъвкавост в размерите, контрол на хидравличните потоци и време на задържане. Функциите за фитодепурация могат да бъдат предпочитани и допълнително експлоатирани с подходящи стратегии, като избор на растителни видове и субстрат, и контрол на потока вода. Със системите за фитоочистване замърсителите се отстраняват чрез комбинация от химични, физични и биологични процеси. Най-ефективните процеси са утаяване, преципитация, адсорбция, асимилация от растенията и микробна активност. Технологията за фитодепурация добавя адсорбиращата способност на средата към традиционното биологично окисляващо пречистване (филтриращо действие от корените на растенията, което също осигурява голяма повърхност, подходяща за развитие на микробни маси, участващи в третирането) и премахване на хранителни вещества, поради растежа им. На Фиг. 18 са описани различни стратегии:

Фигура 17. Общи характеристики на фитодепурацията
Плаващите макрофити, в т.ч. водният зюмбюл (Eichhornia crassipes), са доминиращите инвазивни организми в тропическите водни системи и те могат да играят важна роля за промяна на газообмена между вода и атмосфера. Хидрофитите са растения, които живеят във вода и се приспособяват към заобикалящата ги среда. Те или остават напълно потопени във водата, или повечето от частите на тялото им остават под водата. На фигурата можете да видите няколко примера за възникваща хидрофитна система

Фигура 18. Различни стратегии за фитодепурация
Контаминирани почви
Какво представляват ксенобиотичните съединения (Фиг. 19)?
 Фиг. 19. Определение за ксенобиотици
Каква съдба могат да имат в околната среда (Фиг. 20)?

Фигура 20. Съдба на ксенобиотиците в околната среда
Ксенобиотиците не са непременно външни за биосферата молекули, а могат да бъдат и естествени молекули, присъстващи в неестествени концентрации в околната среда. Те не са непременно токсични молекули, но като цяло са неподатливи на биоразграждането.
Антропогенните молекули могат да произлизат от различни източници:
1) Петрохимична промишленост: – горива (алифатни и ароматни въглеводородни смеси), – чисти химикали за химическа / фармацевтична промишленост (алкохоли, етери, естери, алдехиди, често заместени с Cl-, амино или нитро групи)
2) Целулозо-хартиена промишленост: използва дървесината като суровина и произвежда целулоза, хартия и други продукти на целулозна основа. – избелването на хартия с продукти на основата на хлор произвежда халогенирани молекули, включително хлоро-лигнин
3) Индустрия за синтетична пластмаса: стирен, винилхлорид, разтворители, омрежващи агенти за производство на полимери.
4) Пестицидна промишленост: бензолни и хетероциклични производни, карбамид, фосфорорганични съединения
5) Фармацевтична и козметична индустрия
6) Текстилна промишленост: реактиви за производство на синтетични влакна, детергенти за омекотяване на влакна и пестициди за борба с насекоми/молци
7) Бояджийска промишленост
8) Домашна употреба на химикали (продукти за лична хигиена, почистващи продукти, …)
Типичен пример за естествени молекули, присъстващи в неестествени концентрации са отпадъчните води от маслиновите мелници: те се получават от смилане на маслини за производство на маслиново масло, но имат високо ХПК (виж по-долу) и трябва да бъдат третирани, преди да бъдат изхвърлени в околната среда.
Необходими са отговори на няколко въпроса, преди да се реши дали замърсената почва може да бъде подложена на биоремедиационна обработка. Първият аспект, който трябва да се вземе предвид, е дали говорим за хронично замърсена почва или наскоро е настъпило внезапно замърсяване. В първия случай може да отнеме известно време, за да се реши какво да се предприеме, да се проучи задълбочено ситуацията, да се направят някои предварителни лабораторни тестове и да се предприеме най-добрата стратегия. Във втория случай трябва да се действа незабавно, следвайки опита, който е натрупан за едни и същи замърсители и почви.
Моля, прочетете въпросите, на които трябва да получите отговор, преди да РЕШИТЕ КОЯ СТРАТЕГИЯ ДА ПРИЛОЖИТЕ (Фиг. 21).

Фигура 21. Как да решим коя биоремедиационна стратегия и най-добрата за вашата контаминирана почва
Голям набор от технологии за биоремедиация може да се използва за обеззаразяване на замърсени места (Фиг. 22).

Фигура 22. In situ и ex situ биоремедиационни техники
IN SITU означава, че почвата не се отстранява от първоначалното си местоположение и се третира на същото място, където е настъпило замърсяването.
ЕСТЕСТВЕНО АТЕНЮИРАНЕ: в този термин са включени „различни физични, химични или биологични процеси“. Тези процеси при благоприятни условия действат без човешка намеса за намаляване на концентрацията, токсичността и подвижността на замърсителите в почвата или подпочвените води. In situ процесите включват биоразграждане. Направен е точен мониторинг на процеса, за да се гарантира, че почвата е възстановена. Използването на естествено атенюиране често се предлага като лечебен разтвор от бензол, толуен, етилбензол и ксилен (BTEX) Съвсем наскоро беше предложено естествено атенюиране за хлорирани разтворители, нитроароматни съединения, тежки метали и други замърсители, за които научното разбиране и опит в областта са достатъчно стабилни. Естественото атенюиране се прилага, когато има солидни доказателства, че процесите му трансформират замърсителите към безвредни продукти.
БИОАУГМЕНТАЦИЯ: добавяне на микробни култури, за да се ускори скоростта на разграждане на замърсител. Микроорганизми, нормално присъстващи в замърсените зони, могат да разграждат замърсителите, но тяхното действие може да бъде неефективно и бавно. Биоаугментацията изисква изучаване на локалните сортове, присъстващи на мястото, за да се определи дали е възможна биостимулация. Същите местни бактериални култури могат да бъдат изолирани, култивирани и внедрени на мястото, за да се засили разграждането на замърсителите. Ако местните сортове нямат метаболитни способности да извършват процеса на ре медиация, могат да бъдат въведени екзогенни сортове с различни пътища на разграждане.
БИОСТИМУЛАЦИЯ: добавяне на хранителни добавки за местната микробиота за насърчаване на нейния метаболизъм. Обикновено се отнася до добавяне на ограничаващи скоростта хранителни вещества като фосфор, азот, кислород, донори на електрони към силно замърсени места, за да се стимулират съществуващите бактерии да разграждат опасните и токсични замърсители. Добавянето на тези хранителни вещества подобрява потенциала за разграждане на местните микроорганизми. Сред всички техники за биоремедиация, биостимулацията се счита за най-ефективния метод за ремедиация на въглеводороди, особено петролни продукти и неговите производни. Това се дължи най-вече на наличността на източника на въглерод, който е едно от ограничаващите скоростта хранителни вещества, необходими на местните микроорганизми за тяхната метаболитна активност от петролните замърсители. В допълнение към споменатите ограничаващи скоростта хранителни вещества, внедряването на други органични вещества, богати на хранителни вещества, също може да задейства процеса на ремедиация. В този контекст е показано, че добавянето на био-твърди вещества (богата на хранителни вещества органична материя), получени от пречистването на битови отпадъчни води и неорганични торове, богати на азот и фосфор, може да подобри и ускори скоростта на разграждане на петролните въглеводороди.
БИООБЕЗВЪЗДУШАВАНЕ: наричано още „Подобрено обезвъздушаване на почвата“ е in situ технология, базирана на естественото стимулиране на местната биологична активност с въвеждането на кислород чрез аерирана течност; успешно се прилага за всяко аеробно биоразградимо органично вещество, по-специално за ремедиация на места, замърсени с петролни деривати. Приемът на въздух е с ниска скорост на потока, тъй като е аранжиран само да осигурява кислород, необходим за поддържане на микробната активност. В замърсената зона токсичните съединения се отстраняват от въздушния поток, докато органичните съединения се биоразграждат аеробно. Въздухът се впръсква директно през една или повече дюзи, свързани с вакуумни помпи, което осигурява принудителната циркулация на въздуха в ненаситена замърсена почва. Прилагат се и пасивни системи за биовентилация, които използват естествения обмен на въздух за транспортиране на кислород, отгоре на външния вентилационен отвор е инсталиран еднопосочен вентил, който позволява навлизането на въздух само когато налягането в замърсената почва е по-високо от атмосферното.
Фигура 23. Фиторемедиационна технология
ФИТОРЕМЕДИАЦИЯ: третиране на замърсена почва с използване на растения за почистване на замърсена с опасни замърсители почва (Фиг. 23). По-правилна е дефиницията „използването на зелени растения и свързаните с тях микроорганизми, заедно с подходящи изменения на почвата и агротехнически техники за ограничаване, премахване или обезвреждане на токсичните замърсители на околната среда“, тъй като растенията действат в синергия с ризосферните микроорганизми, които много често си сътрудничат с растенията при реализирането на процеса. Фиторемедиацията е предложена като икономически ефективен подход на растителна основа за ремедиация на околната среда, който се възползва от способността на растенията да концентрират елементи и съединения от околната среда и да детоксикират различни съединения. Концентриращият ефект е резултат от способността на някои растения, наречени хиперакумулатори, да биоакумулират химикали. Ефектът на ремедиация е съвсем различен. Токсичните тежки метали не могат да се разграждат, но органичните замърсители могат да бъдат и обикновено са основните цели за фиторемедиацията. Няколко полеви изпитания потвърдиха възможността за използване на растения за почистване на околната среда.
EX SITU означава, че почвата се отстранява от първоначалното си място и се третира много близо до мястото, където е настъпило замърсяването (on site) или далеч (off site).
БИОЛОГИЧНО РЕКУЛТИВИРАНЕ: това е пълномащабна технология за биоремедиация, която изисква изкопни работи и поставяне на замърсените почви, седименти или активни утайки на място, където те могат да бъдат третирани; това обикновено е технология за ремедиация on site, използвана за подобряване на микробното разграждане на опасни съединения. Обикновено за контрол на излугването на замърсители под земята се използват подложки и пластмасови капаци, за да се избегне замърсяване на водоносните хоризонти. Почвените условия често се контролират, за да се оптимизира скоростта на разграждане на замърсителите, по-специално:
- Съдържание на влага (обикновено чрез напояване или пръскане).
- Аериране (чрез обработване на почвата с предварително определена честота, почвата се смесва и аерира).
- pH (буфериран близо до неутрално рН чрез добавяне на натрошен варовик или селскостопанска вар).
- Други изменения (напр. добавки за пълнене на почвата, хранителни вещества и др.).
Замърсената почва обикновено се третира в елеватори с дебелина до 1 метър. Когато се постигне желаното ниво на третиране, елеваторът се отстранява и се поставя нов. Много често се отстранява само горната част на ремедеирания елеватор, след което новият елеватор се конструира чрез добавяне на по-замърсена почва към останалия материал и се смесва. Това служи за инокулиране на прясно добавения материал с активно развиваща се микробна култура и може да намали времето за третиране. Тази техника се използва успешно от години при управлението и обезвреждането на мазни утайки и други отпадъци от петролните рафинерии. Като цяло, колкото по-високо е молекулното тегло на целевата молекула (т.е. колкото повече пръстени има полицикличния ароматен въглеводород), толкова по-бавна е скоростта на разграждане. Също така, колкото по-хлорирано или нитрирано е съединението, толкова по-трудно е да се разгради. Факторите, които могат да ограничат приложимостта и ефективността на процеса, включват: а) големи изисквания за пространство; б) не могат да бъдат постигнати благоприятни условия за биологично разграждане на замърсителите, което увеличава продължителността на времето за завършване на ремедиирането, особено за рекалцитрираните съединения; в) неорганичните замърсители не са биоразградени; г) потенциала на големи количества прахови частици, отделяни от операциите; и (д) присъствието на метални йони може да бъде токсично за микробите и може да се изтече от замърсената почва в земята. Биологичното рекултивиране, комбинирано с други биологични методи за пречистване, се използва широко и успешно се прилага при много видове отпадъци, особено за депониране на мазни утайки и други отпадъци от петролните рафинерии
КОМПОСТИРАНЕ: Компостирането е процес, който работи за ускоряване на естественото разпадане на органичния материал, като осигурява идеалните условия за бурно развитие на микроорганизмите (Фиг. 24). Крайният продукт на този концентриран процес на разлагане е продукт, богат на хранителни вещества (компост), който може да помогне на зърнените култури, градинските растения и дърветата да растат.

Фигура 24. Компостиране
Биоремедиацията на компоста се отнася до използването на биологична система от микроорганизми в зрял, втвърден компост, за да се секвестрират или разградят замърсителите във вода или почва. Микроорганизмите консумират замърсители в почви, подземни и повърхностни води и въздух. Замърсителите се усвояват, метаболизират и трансформират в хумус и инертни странични продукти, като въглероден диоксид, вода и соли. Биоремедиацията на компост се е доказала ефективна при разграждане или промяна на много видове замърсители, като хлорирани и нехлорирани въглеводороди, съхраняващи дървесина химикали, разтворители, тежки метали, пестициди, петролни продукти и експлозиви. Компостът, използван при биоремедиацията, се нарича „пригоден“ или „проектиран“ компост, тъй като е специално направен за третиране на специфични замърсители на конкретни места. Крайната цел във всеки проект за ремедиация е да се възстанови мястото в неговото състояние преди замърсяване, което често включва възстановяване за стабилизиране на третираната почва. В допълнение към намаляването на нивата на замърсителите, компостът постига тази цел като улеснява растежа на растенията. С тази роля компостът осигурява кондициониране на почвата и също така осигурява хранителни вещества за голямо разнообразие от растителност
БИОРЕАКТОРИ: третирането на замърсена почва в биореактор е най-добрата технология за ремедиация, въпреки че е най-скъпата (Фиг. 25).

Фиг. 25. Примери за третиране на почва в биореактор
Това е ex situ off site технология: почвата, след отстраняването й от първоначалната площадка, може да се третира далеч от първоначалното й местоположение. Почвата се обработва във фаза на суспензия в биореактор, изработен от различни материали (стъкло, стомана, бетон или други материали) и всички параметри на процеса на ремедиация се следят и контролират, за да направят процеса възможно най-ефективен (рН, редокс потенциал, температура, концентрация на замърсителя(ите), наличие на метаболити на разграждането). Следователно, микроорганизмите могат да работят в оптималните си условия. Пречистването на замърсената почва в биореактора обикновено се прилага за почви, замърсени от особено рекалцитрирани молекули, които трудно се отстраняват чрез други технологии за ремедиация (например, силно хлорирана молекула).
Силни и слаби страни на технологиите за биоремедиация
СИЛНИПСТРАНИ
– Намалени разходи по отношение на химическите и физическите стратегии (по-ниски разходи за енергия);
– Намалено въздействие върху околната среда: почвата може да се използва повторно in situ;
– Проблемът (т.е. замърсяването) е решен (замърсителите изчезват, те не се преместват просто от едно място на друго);
– Приемливост от общественото мнение.
СЛАБИ СТРАНИ
– Проблеми за бионаличността на замърсители;
– Проблеми в случай, че замърсителите са повече от един;
– Проблеми с подходящи условия на околната среда (рН, температура, наличие на кислород).
Тест: РО7 Основно ниво
Използвана литература
- Meegoda JN, Li B, Patel K, Wang LB. 2018. A review of the processes, parameters, and optimization of anaerobic digestion. International journal of environmental research and public health, 15(10): 2224
- Wang P, Wang H, Qiu Y, Ren L, Jiang B. 2018. Microbial characteristics in anaerobic digestion process of food waste for methane production–A review. Bioresource technology, 248: 29-36
- Azhar S HM, Abdulla R, Jambo SA, Marbawi H, Gansau JA, Faik AAM, Rodrigues KF. 2017. Yeasts in sustainable bioethanol production: A review. Biochemistry and Biophysics Reports, 10: 52-61
- Prasad RK, Chatterjee S, Mazumder PB, Gupta SK, Sharma S, Vairale MG, .Gupta DK. 2019. Bioethanol production from waste lignocelluloses: A review on microbial degradation potential. Chemosphere, 231: 588-606
- Sivagami K, Sakthivel KP, Nambi IM. 2018. Advanced oxidation processes for the treatment of tannery wastewater. Journal of environmental chemical engineering, 6(3): 3656-3663
- Krzeminski P, Tomei MC, Karaolia P, Langenhoff A, Almeida CMR, Felis E, Fatta-Kassinos D. 2019. Performance of secondary wastewater treatment methods for the removal of contaminants of emerging concern implicated in crop uptake and antibiotic resistance spread: A review. Science of the Total Environment, 648: 1052-1081
- Abatenh E, Gizaw B, Tsegaye Z, Wassie M. 2017. The role of microorganisms in bioremediation-A review. Open Journal of Environmental Biology, 2(1): 038-046
- Wan X, Lei M, Chen T. 2020. Review on remediation technologies for arsenic-contaminated soil. Frontiers of Environmental Science & Engineering, 14(2): 1-14.
Ползи за околната среда от съвременните биотехнологични и ИКТ приложения
НИВО ЗА НАПРЕДНАЛИ
Процесът на производство на биогаз вече е описан в раздела за основното ниво. В обобщение на вече описаното, в развиващите се страни се наблюдава повишен интерес към развитието на технологии за производство на възобновяеми енергийни източници.
Съдържание
Възобновяема енергия: биотехнология за производство на биогаз и биоетанол (ниво B)
Биогаз
Процесът на производство на биогаз вече е описан в раздела за основното ниво. В обобщение на вече описаното, в развиващите се страни се наблюдава повишен интерес към развитието на технологии за производство на възобновяеми енергийни източници. Анаеробното разграждане привлича внимание през последните години след енергийната криза в началото на 70-те години и особено след войната в Персийския залив. Процесът включва третиране на различни видове селскостопански и промишлени отпадъци при производството на биогаз. Интересът към анаеробното третиране на отпадъци от аграрната промишленост се увеличава, тъй като е икономичен, има по-ниски енергийни нужди и е екологично чист, наред с няколко други предимства, в сравнение с процесите на аеробно третиране. Процесът произвежда диджестат, който се използва главно като тор за растениевъдството, тъй като хранителните вещества в суровината остават в минерализираната утайка като достъпни съединения. Това е преработка на отпадъците с цел получаване на гориво, като рециклирането на хранителни вещества представлява устойчив цикъл.
Анаеробното разграждане е сложен, природен, двустепенен процес на разграждане на органични съединения през различни междинни продукти до метан и въглероден диоксид под действието на консорциум от микроорганизми. Взаимозависимостта на бактериите е ключов фактор в процеса на анаеробното разграждане. На първия етап летливите твърди вещества в оборския тор се превръщат в мастни киселини от анаеробни бактерии, известни като „образуващи киселини“. Във втория етап тези киселини допълнително се превръщат в биогаз от по-специализирани бактерии, известни като „образуващи метан“. Процесът на анаеробно разграждане, който работи в природата в продължение на милиони години, може да бъде управляван, за да превърне често проблемния поток от отпадъци в актив за земеделските производители. Нестабилността както по време на стартирането, така и по време на процеса на анаеробно разграждане може да бъде проблематична поради ниската специфична скорост на растеж на участващите метаногенни микроорганизми.
Тук са представени някои допълнителни подробности за реакторите, използвани за производство на биогаз. Известно е, че няколко параметъра са важни за разработването и управлението на инсталацията за производство на биогаз. В частност:
→ работната температура. Процесът може да бъде провеждан при:
– психрофилни условия (20º C) (не се използват много в традиционните инсталации)
– мезофилни условия (35 – 42° C)
– термофилни условия (> 50° C);
Мезофилно разграждане. Реакторът се загрява до 30–35 °C и суровината остава в него обикновено 15–30 дни. Мезофилното разграждане има тенденция да бъде по-стабилно и толерантно в сравнение с термофилния процес, но производството на газ е по-малко, необходими са по-големи резервоари за разграждане и дезинфекцията, ако е необходимо, е отделен етап от процеса.
Термофилно разграждане. Реакторът се загрява до 55 °C и времето на престой обикновено е 12-14 дни. Термофилните системи за разграждане предлагат по-високо производство на метан, по-добра производителност, по-ефективно „убиване“ на патогени и вируси, но изискват по-скъпа технология, по-голямо влагане на енергия и по-висока контрол на работата. По време на този процес 30–60% от смилаемите твърди вещества се превръщат в биогаз.
Следователно, процесът в термофилни условия е по-бърз, но когато характеристиките на захранващия субстрат се променят с времето, сезона и т.н., се използват мезофилните условия.
à твърдото съдържание в реактора. Можем да разграничим:
– мокри/влажни процеси (5 – 8% сухо вещество в реактора)
– полусухи процеси (сухо вещество = 8 – 20%)
– сухи процеси (сухо вещество > 20%)
à метаболитните фази в реактора.
– ЕДНОФАЗОВ процес: цялата микробна верига се съхранява в един реактор;
– ДВУФАЗЕН процес: хидролитичната ферментативна фаза се отделя от метаногенната.
Как работи инсталацията за биогаз? Моля, вижте уебсайта: https://www.youtube.com/watch?v=3UafRz3QeO8
Следващата картина (Фиг. 1) показва различните конфигурации на биореактори, които могат да бъдат разработени за производство на биогаз. Те могат да се различават по два параметъра: хидравличната схема и начина на работа на микроорганизмите в реактора (свободни или имобилизирани клетки).

Фигура. 1. Реактори за производство на биогаз
Реакторът с непрекъснато разбъркване в резервоара (CSTR) е често срещан модел за химически реактор в екологичното инженерство. Това е реактор, работещ в периодичен режим, оборудван с бъркалка или друго смесително устройство, за да осигури ефективно смесване. Идеалният CSTR предполага перфектно смесване. В реакторът с перфектно смесване, захранващия разтвор се смесва незабавно и равномерно в целия реактор при влизането си в него. Следователно, изпълнението е функция от времето на престой и скоростта на реакция. Контактът с твърдата фаза на биореактора може да се подобри чрез резервоар за утаяване, който отделя течната среда от твърдата част, която след това се изпраща обратно в биореактора (анаеробния процес, представен на фигурата).
CSTR се състои от: резервоарен реактор (обикновено с постоянен обем), разбъркваща система за смесване на реагенти (бъркалка или въвеждане на реагентите чрез бърз поток), захранващи и изходни тръби за въвеждане на реагентите и отстраняване на продуктите CSTR обикновено се използва при промишлена преработка. Биодиджесторите за производство на биогаз са реактори с резервоар с непрекъснато разбъркване, изработени от бетон или стомана.
Реакторът с анаеробен слой е напълнен с инертна подложка, която осигурява много голяма повърхност за микробен растеж. Потокът преминава през средата и анаеробните микроби се прикрепят към подложката, създавайки тънък слой от анаеробни бактерии, наречен биофилм – този филм дава на диджестора името си, реактор с фиксиран филм или реактор с напълнен слой. След това тези микроби продължават да растат, като отстраняват материал от отпадъчните води, докато преминават през реактора. В повечето диджестери микробите плават в течността и част от тези активно растящи микроорганизми се изхвърлят непрекъснато с отпадъчните води. В диджестора с напълнен слой, бактериите остават прикрепени към пластмасовата подложка, когато се изхвърлят отпадъчните води. Микроорганизмите вече са „на работа“, когато се добави новата порция поток. Диджестерите с напълнени слоеве имат по-малки реакторни съдове, по-кратко време на задържане и трябва да бъдат заредени със суровина, която лесно ще преминава през средата, без да я запушва. Типичните времена на задържане са от три до пет дни и диджесторите могат да работят при стайна температура в горещ климат, но обикновено се нагряват до мезофилни или термофилни температури.
Какви са предимствата на анаеробния реактор с напълнен слой? Повишена стабилност и производителност в анаеробните реактори може да се постигне, ако микробният консорциум се задържи в реактора. Двата начина за постигане на това са използването на гъста бактериална гранула, както в реакторите на UASB или микробен биофилм, прикрепен към инертни носители в гореописаните реактори с напълнен слой. Технологията на анаеробните утайки с възходящ поток (UASB), обикновено наричана UASB реактор, наистина е форма на анаеробно разграждане, която се използва за пречистване на отпадъчни води и като метаногенен (произвеждащ метан) диджестер. Подобна, но вариантна технология на UASB е дигестерят с разширени гранулирани утайки (EGSB) (Фиг. 2). Реакторът с разширен гранулиран утаечен слой (EGSB) е вариант на концепцията UASB. Отличителната негова черта е, че за отпадъчните води, преминаващи през утайката, е проектирана по-бърза скорост. Увеличеният поток позволява частично разширяване (и от това произлиза името на реактора) на гранулирания слой утайка, подобрявайки контакта на отпадъчни води и утайката, както и засилвайки отделянето на малки неактивни суспендирани частици от утайката. Увеличената скорост на потока се постига чрез използване на високи реактори, или чрез включване на рециклиране на отпадъчни води (или и двете).

Фигура. 2. Реактори с фиксиран / разширен слой (ляво) и UASB реактор (дясно)
UASB е анаеробен процес, който образува слой от гранулирана утайка, суспендирана в резервоара. Отпадъчните води текат нагоре през нея и се обработват от анаеробните микроорганизми. Възходящият поток, комбиниран с утаяващото действие на гравитацията, спира утайката с помощта на флокуланти. Тя започва да достига зрялост за около три месеца. Започват да се образуват малки гранули от утайка и те съдържат органични вещества и бактерии без никаква поддържаща матрица, условията на потока създават селективна среда, в която оцеляват и се размножават само онези микроорганизми, способни да се прикрепят един към друг. В крайна сметка агрегатите образуват плътни компактни структури, наричани „гранули“. Произвежда се биогаз с висока концентрация на метан, който може да бъде уловен и използван като източник на енергия, за генериране на електричество и за покриване на собствената работна мощност на реактора. Технологията се нуждае от постоянен мониторинг, когато се използва, за да се гарантира, че утайката се поддържа, а не се измива (като по този начин се губи ефекта). Топлината, произведена като страничен продукт от производството на електроенергия, може да се използва повторно за загряване на резервоарите за разграждане. Опаковъчната среда в реактора с напълнен слой и гранулираната утайка в реактора UASB служат като филтър, предотвратяващ измиването на бактериите, а също така осигуряват по-голяма повърхност за по-бързо развитие на биофилм и подобрена метаногенеза. Установено е, че специфичната повърхност, порьозността, грапавостта на повърхността, размерът на порите и ориентацията на опаковъчния материал играят важна роля в работата на анаеробния реактор. Реакторите с биофилм или фиксиран филм зависят от естествената склонност на смесените микробни популации да адсорбират върху повърхности и да образуват биофилм. Много носещи материали са изследвани относно тяхната пригодност като носители за биофилм, включително евтини, лесно достъпни материали като пясък, глина, стъкло, кварц и редица пластмаси. В природата микроорганизмите обитават външната и вътрешната повърхност на камък, чакъл или пясък. Това образуване на биофилм се превръща във важен фактор за способността за самопречистване на водата. Растежът на микроорганизми в биофилм е основата за биологично пречистване на водата чрез процеси като денитрификация и за интензифициране на аеробни и анаеробни пречиствания на отпадъчни води. Съобщава се и за използването на реактори с напълнени слоеве за пречистване на различни видове отпадъчни води, например млечни и пивоварни. Образуването на биофилм върху инертни материали подобрява скоростта на трансформация чрез намаляване на нейната чувствителност към вариации в концентрацията и инхибиращи вещества. Ефективността на отстраняване на органични вещества в реактори с неподвижен слой е пряко свързана с характеристиките на носещия материал, използван за имобилизиране на анаеробите. Ретикуларната полиуретанова пяна има висока специфична повърхност. Това е отлична колонизационна матрица за реактори с анаеробен филтър. Размерът на порите е един от най-важните параметри за микробиологичните и инженерните изисквания при високоефективните съоръжения. Разработват се много видове модели с материали за разграждане на различни органични отпадъци в реактори за анаеробно разграждане.
Разработването на реактори с фиксирана биомаса гарантира значителен напредък в познаването и прилагането на анаеробните процеси за третиране на отпадъци. В сравнение с конвенционалните агрегати, биореакторите с фиксиран филм са ефективни при по-високи нива на органично зареждане, поради по-ефективното задържане на биомаса в реакционната зона, което води до по-дълго време на задържане на клетките. Анаеробните реактори с имобилизирана биомаса също показват по-добри реакции на органични шокови натоварвания и токсични вещества. В много случаи реакторите с имобилизирана биомаса напълно възстановяват работата си след такива проблеми
Как работи UASB реактора? Моля, погледнете това видео https://www.youtube.com/watch?v=0QsEdlJgllI
Полезен резултат от процеса на анаеробно разграждане е диджестата. Диджестатът е останалата част от разградената биомаса след производството на биогаз: това е стабилна органична материя, богата на различни хранителни вещества (N, P, K). В зависимост от суровината, използвана за производството на биогаз, диджестатът може да бъде директно използваем като органичен тор по същия начин, по който суровите животински фецеси се разпръскват върху полето в селското стопанство. Също така може да бъде допълнително подобрен, за да възстанови висококачествените минерални хранителни вещества. Използването на диджестатите като органичен тор показва множество предимства: позволява повторно използване на хранителни вещества и замества минералния тор с изкопаем произход. В сравнение със суровия оборски тор, диджестатът също се дезинфекцира благодарение на процеса на производство на биогаз, неутрализиращ повечето патогени в първоначалната суровина, като бактерии и вредители по растителните култури. Хомогенността и плътността на диджестата също позволяват по-бързо проникване в почвата в сравнение със суровия тор, което прави хранителните вещества по-лесно достъпни за растенията в почвата. Ако не е подходящ за селскостопански цели, диджестатът може да бъде допълнително обработен и използван като суровина за промишлени процеси.
Обща схема на инсталация за производство на биогаз е представена по -долу (Фиг. 3).

Фигура. 3. Инсталация за биогаз.
Биоетанол
Страните по света са обмислили и насочили политиките към увеличаване и икономично използване на биомасата за посрещане на бъдещите им енергийни нужди, за да се постигнат целите за намаляване на въглеродния диоксид, както е посочено в Протокола от Киото, както и за намаляване на зависимостта от доставките на изкопаеми горива. Въпреки че биомасата може да бъде огромен източник на транспортни горива като биоетанол, тя обикновено се използва за генериране както на енергия, така и на топлина, чрез изгаряне. Етанолът в момента е най-широко използваното течно биогориво за моторни превозни средства. Значението на етанола се увеличава поради редица причини, като глобалното затопляне и изменението на климата.
Глобалният пазар на биоетанол навлезе във фаза на бърз, преходен растеж. Много страни по света пренасочват фокуса си към възобновяеми източници за производство на електроенергия поради изчерпване на запасите от суров петрол. Тенденцията се разширява и при транспортирането на горивото. Етанолът има потенциал като ценен заместител на бензина на пазара на транспортни горива. Разходите за производство на биоетанол обаче, са повече в сравнение с изкопаемите горива. Бразилия и САЩ са двата големи производители на етанол, които съставляват 62% от световното производство. Мащабното производство на горивен етанол се основава главно на захароза от захарна тръстика в Бразилия или нишесте, главно от царевица, в САЩ. Моля, вижте схемата по-долу (Фиг. 4).

Фигура 4. Схема за производство на биоетанол от захар и нишесте.
Настоящото производство на етанол на базата на царевица, нишесте и богати на захари вещества може да не е желателно поради тяхната хранителна и фуражна стойност. Разходите са важен фактор за широкомащабно разширяване на производството на биоетанол. Горивото – зелено злато от лигноцелулозни отпадъци избягва съществуващата конкуренция на храни срещу гориво, породена от производството на биоетанол на зърнена основа. Следователно, производството на биоетанол може да бъде пътя към ефективното оползотворяване на селскостопански отпадъци. Оризовата слама, пшеничната слама, царевичната слама и захарната тръстика са основните селскостопански отпадъци по отношение на наличната биомаса.
Лигноцелулозните материали са възобновяеми, с ниска цена и са в изобилие. Те включват растителни остатъци, треви, дървени стърготини, дървесни стърготини и др. Проведени са обширни изследвания върху производството на етанол от лигноцелулоза. Лигноцелулозите се обработват за производство на биоетанол чрез три основни операции:
1) предварителна обработка за делигнификация, необходима за освобождаване на целулозата и хемицелулозата преди хидролиза;
2) хидролиза на целулоза и хемицелулоза за получаване на ферментируеми захари, включително глюкоза, ксилоза, арабиноза, галактоза, маноза и ферментация на редуциращи захари.
3) невъглехидратните компоненти на лигнина също имат приложения с добавена стойност
Най-важното предизвикателство при преработката за производството на биогориво е предварителната обработка на биомасата. Лигноцелулозната биомаса се състои от три основни съставки, а именно хемицелулоза, лигнин и целулоза. Методите за предварително третиране се отнасят до разтваряне и разделяне на един или повече от тези компоненти на биомасата. Това прави останалата твърда биомаса по-достъпна за по-нататъшно химическо или биологично третиране. Лигноцелулозният комплекс се състои от матрица от целулоза и лигнин, свързана с хемицелулозни вериги. Предварителната обработка се извършва за нарушаване на целостта на матрицата, за да се намали степента на кристалност на целулозата и да се увеличи фракцията на аморфната целулоза, най-подходящата форма за ензимна атака. Предварителната обработка се предприема с цел промяна в макроскопичния и микроскопичния размер и структура на биомасата, както и в субмикроскопската структура и химичния състав. Това прави лигноцелулозната биомаса податлива на бърза хидролиза с повишени добиви на мономерни захари.
Целите на ефективен процес на предварителна обработка са:
- i) образуване на захари директно или впоследствие чрез хидролиза, за да се избегне загуба и/или разграждане на образуваните захари
(ii) да се ограничи образуването на инхибиторни продукти
(iii) намаляване на енергийните нужди и минимизиране на разходите.
Физическите, химичните, физико-химичните и биологичните обработки са четирите основни типа използвани техники за предварителна обработка. Като цяло, комбинацията от тези процеси се използва в етапа на предварителна обработка.
Сред предварителна физическата обработка, първата стъпка за производство на етанол от твърди селскостопански отпадъци е механичното намаляване на размера чрез смилане, стриване или нарязване. Това намалява кристалността на целулозата и подобрява ефективността на преработката надолу по веригата. Пиролизата е физическа обработка: материалите се обработват при температура по-висока от 300 °C, при което целулозата бързо се разлага, за да се получат газообразни продукти и остатъчен въглен. Остатъчният въглен се обработва допълнително чрез излугване с вода или с мека киселина. Отцедната вода съдържа достатъчно източник на въглерод, за да поддържа растежа на микробите за производството на биоетанол. Глюкозата е основният компонент на инфилтрата. Предварителната обработка на лигноцелулозна биомаса в микровълнова печка също е възможен метод, който използва високата ефективност на нагряване на микровълновата фурна. Микровълновата обработка използва топлинни и нетермични ефекти, генерирани от микровълни във водна среда. Топлината се генерира в биомасата чрез микровълнова радиация, в резултат на вибрациите на полярните връзки в биомасата и околната водна среда. Тази уникална функция за нагряване води до експлозивен ефект сред частиците и подобрява разрушаването на стабилните структури на лигноцелулозата. При нетермичния метод, т.е. метода на облъчване с електронен лъч, полярните връзки вибрират, тъй като те са подравнени с непрекъснато променящото се магнитно поле и разрушаването и ударът на полярните връзки ускорява химичните, биологичните и физическите процеси.
Сред физико-химичните обработки експлозията с пара е обещаваща, защото прави биомасата по-достъпна за целулазна атака. Този метод на предварителна обработка не използва никакъв катализатор и биомасата се фракционира за получаване на левулинова киселина, ксилитол и алкохоли. При този метод биомасата се загрява с помощта на пара под високо налягане (20–50 bar, 160–290 °C) за няколко минути; след това реакцията се спира чрез внезапна декомпресия до атмосферно налягане. Когато се остави парата да се разшири в лигноцелулозната матрица, тя разделя отделните влакна. Освобождаването на голяма част от ксилозата (45–65%) прави предварителната обработка с експлозия с пара икономически привлекателна.
Химическите методи за предварителна обработка включват използването на разредена киселина, основи, амоняк, органичен разтворител, CO2 или други химикали. Тези методи са лесни за работа и имат добри добиви на конверсия за кратък период от време. Киселинната предварителна обработка се счита за една от най-важните техники и цели високи добиви на захари от лигноцелулози. Обикновено се извършва от концентрирани или разредени киселини (обикновено между 0,2% и 2,5% w/w) при температури между 130 °C и 210 °C. Киселата среда атакува полизахаридите, особено хемицелулозите, които се хидролизират по-лесно от целулозата. Въпреки това, предварителната обработка с киселина води до производството на различни инхибитори като оцетна киселина, фурфурол и 5-хидроксиметилфурфурол. Тези продукти са инхибитори на растежа на микроорганизмите. Следователно, хидролизатите, които ще се използват за ферментация, трябва да бъдат детоксикирани. Алкалната предварителна обработка на лигноцелулози разгражда лигниновия матрикс и прави целулозата и хемицелулозата достъпни за ензимно разграждане. Алкалното третиране на лигноцелулоза разрушава клетъчната стена чрез разтваряне на хемицелулози, лигнин и силициев диоксид, чрез хидролизиране на уронови и оцетни естери и чрез набъбване на целулозата. Кристалността на целулозата се намалява поради подуване. Чрез този процес субстратите могат да бъдат фракционирани до алкално разтворим лигнин, хемицелулози и остатък, което улеснява използването им за по-ценни продукти. Крайният остатък (главно целулоза) може да се използва за производство на хартия или целулозни производни. Органичните разтворители са алтернативни методи за делигнификация на лигноцелулозни материали. Използването на смеси от органичен разтворител/вода елиминира необходимостта от изгаряне на течността и позволява изолирането на лигнините (чрез дестилация на органичния разтворител). Примери за такива предварителни обработки включват използването на 90% мравчена киселина и тази на въглероден диоксид под налягане в комбинация (50% смес алкохол/вода и 50% въглероден диоксид). Други различни органични разтворители, които могат да се използват за делигнификация, са метанол, етанол, оцетна киселина, перформатна киселина и оцетна киселина, ацетон и др.
Биологични третирания. Ензимната хидролиза е предпочитаният метод за захарификация поради по-високите си добиви, по-високата селективност, по-ниските разходи за енергия и по-меките условия на работа от химичните процеси.
Различен начин на ферментация. Ферментацията на биоетанол може да се извърши в периодичен, периодичен с подхранване или непрекъснат режим. В периодичния процес, субстратът се осигурява в началото на процеса без добавяне или отстраняване на средата. Известен е като най-простата система на биореактор с гъвкав и лесен процес на управление. Процесът на ферментация се извършва в затворена система с висока концентрация на захари в началото и завършва с висока концентрация на продукт. Периодичната система има няколко предимства, включително пълна стерилизация, не изисква специални умения, лесно се управлява суровината и може лесно да се контролира. Производителността обаче, е ниска и се нуждае от интензивни и високи разходи за труд. Наличието на висока концентрация на захар във ферментационната среда може да доведе до инхибиране на клетъчния растеж и производството на етанол от субстрата. Рециклирането на клетките при периодична ферментация е стратегически метод за ефективно производство на етанол, тъй като намалява времето и разходите за приготвяне на инокулум. Другите предимства на полупериодичния процес са лесно събиране на клетките, стабилна работа и дългосрочна производителност. Захарни материали и имобилизирани дрождеви клетки се използват за улесняване на клетъчното разделяне за рециклиране на клетките. Приложението му за лигноцелулозни материали е изключително трудно, тъй като лигноцелуозният остатък остава във ферментационната среда заедно с клетките на дрождите. Използването на свободни клетки в тази система намалява концентрацията на дрожди и води до по-ниско производство на етанол в следващите партиди. Ферментацията в полунепрекъснат режим може да се извърши чрез заместване на свободните клетки с имобилизирани клетки. Полунепрекъснатата ферментация е комбинация от периодичен и непрекъснат режим, който включва добавяне на субстрат във ферментатора без отстраняване на средата. Той се използва за преодоляване на проблема с инхибирането на субстрата при периодичния режим. Обемът на културата при периодично захранвани процеси може да варира в широки граници, но трябва да се подава правилно с определена скорост с подходящия състав на компонента. Производителността на периодично подхранваната ферментация може да се увеличи чрез поддържане на субстрата при ниска концентрация, което позволява превръщането на достатъчно количество ферментиращи захари в етанол. Този процес има по-висока производителност, по-висок разтворен кислород в средата, по-кратко време на ферментация и по-нисък токсичен ефект на компонентите на средата в сравнение с други видове ферментация. Въпреки това, производителността на етанол в периодичната култура е ограничена от скоростта на подаване и концентрацията на клетъчната маса.
Обемът на културата при полунепрекъснатите процеси може да варира в широки граници, но трябва да се подава правилно с определена скорост с подходящия компонентен състав. Производителността на ферментацията в полунепрекъснат режим може да се увеличи чрез поддържане на субстрата при ниска концентрация, което позволява превръщането на достатъчно количество ферментиращи захари в етанол. Този процес има по-висока производителност, повече разтворен кислород в средата, по-кратко време на ферментация и по-нисък токсичен ефект на компонентите на средата в сравнение с други видове ферментация. Въпреки това, производителността на етанол в подаваната партида е ограничена от скоростта на подаване и концентрацията на клетъчната маса.
Непрекъснатата работа се извършва чрез постоянно добавяне на субстрати, хранителна среда и хранителни вещества в биореактор, съдържащ активни микроорганизми. Обемът на културата при непрекъсната работа трябва да бъде постоянен и ферментационните продукти да се отнемат непрекъснато от средата. От горната част на биореактора могат да се получат различни видове продукти като етанол, клетки и остатъчна захар. Предимствата на непрекъснатата система пред партидната и захранващата партидна система са по-висока производителност, по-малки обеми биореактори и по-малко инвестиционни и експлоатационни разходи. При висока скорост на разреждане, производителността на етанол се увеличава, докато добивът на етанол се намалява поради непълно потребление на субстрата от дрожди.те Възможността за настъпване на замърсяване обаче, е по-висока в сравнение с другите видове ферментации. Освен това, способността на дрождите да произвеждат етанол в непрекъснат процес се намалява поради дългото време на култивиране.
Фактори, влияещи върху производството на биоетанол
Няколко фактора влияят върху производството на биоетанол: температура, концентрация на захари, рН, време на ферментация, скорост на разбъркване и количество инокулум. Скоростта на растеж на микроорганизмите се влияе пряко от температурата. Високата температура, която е неблагоприятна за растежа на клетките, се превръща в стрес фактор за микроорганизмите. Идеалният температурен диапазон за ферментация е между 20 и 35 оC за Saccharomyces cerevisiae. Свободните клетки на S. cerevisiae имат оптимална температура близо до 30 °C, докато имобилизираните клетки имат малко по-висока оптимална температура поради способността си да пренасят топлина от повърхността на частиците във вътрешността на клетките. Освен това ензимите, които регулират микробната активност и процеса на ферментация, са чувствителни към висока температура, която може да денатурира нейната третична структура и да инактивира ензимите. По този начин температурата се регулира внимателно по време на процеса на ферментация.
Увеличаването на концентрацията на захарите до определено ниво води до увеличаване на скоростта на ферментацията. Използването на прекомерна концентрация на захар обаче, ще доведе до постоянна скорост на ферментация. Това е така, защото концентрацията на захарите надхвърля капацитета за поемането им от микробните клетки. Като цяло, максималната скорост на производство на етанол се постига при използване на захари в концентрация 150 g/L. Първоначалната концентрация на захар също се счита за важен фактор при производството на етанол. Висока производителност на етанол и добив при периодична ферментация могат да бъдат постигнати чрез използване на по-висока начална концентрация на захар. Тя се нуждае обаче, от по-дълго време на ферментация и по-високи разходи за изолиране.
Производството на етанол се влияе от рН на културалната среда, тъй като влияе върху бактериалното замърсяване, растежа на дрождите, скоростта на ферментацията и образуването на странични продукти. Пропускливостта на някои основни хранителни вещества в клетките се влияе от концентрацията на Н+ във ферментационния бульон. Освен това, оцеляването и растежът на дрождите се влияе от рН в диапазона 2,75–4,25. При ферментацията за производство на етанол оптималният диапазон на рН за S. cerevisiae е 4.0–5.0 [34]. Когато рН е по -ниско от 4,0, се изисква по-дълъг инкубационен период, но концентрацията на етанол не се намалява значително. Въпреки това, когато рН е над 5,0, концентрацията на етанол намалява значително.
Времето на ферментация влияе върху растежа на микроорганизмите. По-краткото време на ферментация причинява неефективна ферментация поради неадекватен растеж на микроорганизми. От друга страна, по-дългото време на ферментация дава токсичен ефект върху растежа на микробите, особено в периодичен режим, поради високата концентрация на етанол във ферментационната течност. Пълна ферментация може да се постигне при по-ниска температура, като се използва по-дълго време на ферментация, което води до най-нисък добив на етанол.
Скоростта на разбъркване контролира пропускливостта на хранителните вещества от ферментационната среда вътре в клетките и отстраняването на етанола от клетката до ферментационната среда. Колкото по-голяма е скоростта на разбъркване, толкова по-голямо е количеството произведен етанол. Освен това, увеличава се количеството консумирана захар и намалява инхибиторния ефект на етанола върху клетките. Общата скорост на разбъркване за ферментация от клетките на дрождите е 150-200 об./мин. Излишната скорост на разбъркване не е подходяща за равномерното производство на етанол, тъй като причинява ограничаване на метаболитната активност на клетките.
Концентрацията на инокулума не дава значителни ефекти върху крайната концентрация на етанол, но влияе върху нормата на потребление на захар и производителността на етанол.
Биотехнология за производство на биопластмаси (ниво Б)
Основни стъпки към съвременните биопластмаси
- Биопластмасите не са истинска иновация: естествените смоли се използват от древни времена (например кехлибар, шеллак и др.)
- От 1860 г. се произвеждат първите пластмаси, получени от целулоза (напр. целулоид, целофан)
- През 40-те години на миналия век, Хенри Форд е направил автомобил с пластмаси, получени от соя
- През 50-те години се появяват пластмаси, получени от петролни разливи
- Петролната криза през 70-те години: възобновява се интереса към биопластмасите.
Понастоящем се наблюдава увеличение на търсенето на биопластмаси, главно поради неотложните екологични проблеми (изчерпване на ресурсите, парниковия ефект, изхвърлянето на отпадъци и др.). Фиг. 5, 6 и 7 предлагат допълнителна информация за биопластмасите.

Фигура 5. Биопластмасите и европейското законодателство
Пластмасата и каучука са полимерни материали, състоящи се от мономери. Те се произвеждат главно от петрол и основният материал е невъзобновяем. Около 4% от потреблението на петрол в света е като суровина в производството на пластмаси; подобно количество се използва като енергия в производствения процес. В допълнение към петрола, пластмасовото производство изисква използването на химически добавки като пластификатори, забавители на пламъка, топлинни и UV стабилизатори, биоциди, пигменти и удължители. Няколко добавки се класифицират като опасни, съгласно регламентите на ЕС (канцерогенни, мутагенни, вредни за репродуктивното здраве или за водния живот или с постоянни отрицателни въздействия върху околната среда).
През 60-те години на ХХ век, пластмасата се разглежда за първи път с тревога по отношение на замърсяването на моретата и океаните и негативните й въздействия върху здравето на хората и околната среда започват да се описват. Всъщност пластмасите освобождават токсични химикали през целия жизнен цикъл на продукта.
Рециклирането на пластмасите е възможно решение. То обаче, не е единственото решение, необходимо за ограничаване на отпадъците от пластмаса, които замърсяват околната среда. Пластмасовите изделия могат да варират от нерециклируеми само веднъж или два пъти, или определен брой пъти, но не завинаги. След това ограничение, пластмасата ще се окаже в депо. Освен това, много пластмасови потребители дори не позволяват на пластмасата им да има такъв дълъг живот. Възобновяемите пластмаси, което означава пластмаси, получени от възобновяеми източници и лесно биоразградими в околната среда, могат да предложат решение на проблема с биопластичното отравяне.

Fig. 6. Biobased and biodegradable

Фигура 7. Основни типове биопластмаси, произвеждани по света
Био-базиран е дефиниция в европейски стандарт EN 16575, която означава „получен от биомаса“. Биоразградими материали са материали, които могат да бъдат разрушени от микроорганизми като бактерии или гъби във вода, въглероден диоксид или метан и биомаса. Въпреки това, биоразградимостта зависи от условията на околната среда: наличие на микроорганизми, температура и наличност на кислород и вода. Компостиращите материали са материали, които се разрушават в условия на компостиране. Условията на индустриалното компостиране изискват повишена температура (55 °C – 60 °C), комбинирана с висока относителна влажност и наличието на кислород и те всъщност са оптимални в сравнение с други условия на разграждане в почвата, повърхностните води и морската вода. Съответствието с EN 13432 се счита за добра мярка за компостиране на опаковъчните материали. Според този стандарт пластмасовите опаковки могат да бъдат наречени компостируеми. Някои подробности за 3-те основни категории биопластмаси са дадени по-долу.
Пластмаси на основата на скорбяла
75% от всички органични материали на Земята присъстват под формата на полизахариди. Скорбялата е важен полизахарид. Растенията синтезират и съхраняват скорбяла в структурата си като енергиен резерв. Скорбялата се открива в семената, клубените или корените на растенията. Източници на скорбяла са царевица, пшеница, ориз, картофи, тапиока, грах и много други растителни ресурси. Повечето от скорбялата, произведена в световен мащаб, произхожда от царевица. Скорбялата обикновено се извлича от растителни ресурси чрез процеси на мокро смилане. Скорбялата се състои от два вида полимери на глюкозата: амилоза и амилопектин. Амилозата е по същество линеен полимер, при който глюкозните блокове се свързват предимно чрез α-D-(l, 4) глюкозидни връзки. Амилопектинът е разклонен полимер, съдържащ периодични разклонения, свързани с основната структура чрез α-D-(l, 6) глюкозидни връзки. Съдържанието на амилоза и амилопектин в скорбялата варира и зависи от нейния източник.

Важен клас пластмаси е този, базиран на скорбяла. Започвайки в началото на 90-те години, развитието на научните изследвания и технологиите доведе до откриването на сложни естествени полимери като скорбяла (от царевица, картофи и др.) с биоразградими макромолекули (полимерни комплексо-образуващи вещества), за да се получат термопластични и биоразградими иновативни материали в индустриален мащаб. По-специално, базираната на скорбяла технология Novamont (Фиг. 8) използва условия за обработка, които могат почти напълно да унищожат кристалността на амилозата и амилопектина, в присъствието на макромолекули, които са в състояние да образуват комплекс с амилозата. Те могат да бъдат от естествен или синтетичен произход и са биоразградими. Комплексът, образуван от амилоза и комплексообразуващия агент, обикновено е кристален и се характеризира с единична спирала на амилозата около комплексообразуващия агент. За разлика от амилозата, амилопектинът не взаимодейства с комплексообразуващия агент и остава в аморфното си състояние. Източникът на скорбяла, т.е. съотношение между амилоза и амилопектин, условията на обработка и естеството на комплексните агенти позволяват конструиране на различни супрамолекулни структури с много различни свойства. През последните няколко години са направени много успешни усилия за увеличаване на количеството възобновяеми суровини за производство на биоразградими полиестери. Затова Novamont е един от най-важните играчи в биопластмасите на основата на скорбяла. В момента компанията работи в разработването на проект за биорафиниране, състоящ се от иновативен модел за разработване, способен да синтезира различни химически междинни съединения, използвайки възобновяеми суровини, култивирани с нисък разход и в пределни зони, вместо изкопаеми суровини.
Пластмаси от поли-млечна киселина
Синтетични биоразградими поли-лактони като поли-млечна киселина (PLA), поли-гликолова киселина (PGA) и поли-капролактон (РС1) са полимери, които се разграждат чрез проста хидролиза на естерните връзки. Хидролитичните продукти от този процес на разграждане след това се трансформират в нетоксични субпродукти (Фиг. 9).

Фигура 9. Жизнен цикъл на PLA
Пластмасите PLA се получават от ферментацията на селскостопански продукти, богати на нишесте вещества като царевица, пшеница или сладка и фуражна царевица. Процесът включва превръщане на царевицата или другите въглехидратни източници в глюкоза, последвано от ферментацията й в млечна киселина (Фиг. 9 и 10).

Фигура 10. PLA получаване от скорбяла
PLA, получен от млечна киселина, е термопластичен, биоразградим алифатен полиестер с голям потенциал за приложения за опаковане. Мономерите на млечната киселина са директно поликондензирани или претърпяват полимеризация с отваряне на пръстена на лактида, което води до образуване на PLA пелети. Свойствата на PLA като опаковъчен материал зависят от съотношението между двата оптични изомера на мономера на млечната киселина. Когато се използват 100% L-мономери, това води до много висока кристалност и точка на топене, докато 90/10% D / L съполимери отговарят на изискванията за насипни опаковки. PLA е първият биобазиран полимер комерсиализиран в голям мащаб и може да бъде оформен в инжекционни формулировки, филми и покрития. PLA замества полиетилена с висока плътност, полиетилена с ниска плътност (LDPE), полиетилен терефталата и PS като опаковъчен материал.
Основните свойства на PLA са: i) механичното съпротивление и топлинната чувствителност са подобни на традиционните пластмаси; ii) твърдостта, сковаността и степента на еластичност са подобни на PET, iii), той може да съдържа мазнини, масла, алкохолни и алифатни молекули, iv) оскъдна резистентност към киселини и бази, но добра устойчивост на UV радиация, v) може да се отпечатва и боядисани, vi) Може да се трансформира в стоки чрез стандартни машини, използвани за традиционните пластмаси, vii) фазата на последваща употреба може да включва компостиране в промишлените инсталации.
Полихидроксиалканоати
Полихидроксиалканоатите (Phas) са био-разградими полимери, които се натрупват от някои бактерии като резервно съединение под формата на вътреклетъчни гранули. PHA е един от биополимерите, които могат ефективно да заменят конвенционалните нефтохимически пластмаси с техните материални свойства, които са съизмерими. Дори и сега производството им в голям мащаб все още е ограничено от високите им производствени разходи в сравнение с конвенционалните пластмаси, основани на изкопаеми горива, като PHA цената, в зависимост от полимерния състав, варира от 2,2 до 5,0 €/kg, която е най-малко три пъти по-високи от основните петрохимични полимери, които струват по-малко от 1,0 €/kg (изчисления, направени през 2016 г.).
В по-голямата част от фирмите, произвеждащи PHAs, се използват предимно чисти култури. Проблемът с употребата на чисти култури е изискването за стерилност и рафинирани субстрати, ако не се използват растителни суровини, като по този начин се ограничава процеса на комерсиализация. Всички тези проблеми трябва да бъдат преодолени, като се използват смесени микробни култури (MMCs): те съчетават трансформацията на отпадъците в получаване на ценна продукция с добавена стойност. Биологично третиране на отпадъчните води и управлението на утайките за възстановяване на въглерода от отпадъчни води като PHAS е начин за трансформиране на инфраструктурата за опазване на околната среда в края на процеса по биорафиниране. Интеграционни стратегии за производството на MMC PHA в процесите на пречистване на отпадъчни води са предложени за отпадъчни води от промишлени процеси и обработка на общински отпадъчни води.
Един от най-добре характеризираните членове на семейството PHA е полихидроксибутирата (PHB), произвеждан от микроорганизми, които го натрупват в клетъчната цитоплазма. През 1926 г. първо се открива микробно производство на линеен полиестер на D (-) – 3 -хидроксимаслена киселина като вътреклетъчни гранули, както в Грам-положителни, така и в Грам-отрицателни бактерии при условия на глад (Фиг. 11).

Фигура 11. Полихидроксибутират
Цената е основният недостатък на производството на PHB по време на индустриализацията. Промишленото производство на PHB е по-скъпо от това на петропластите. Производството на големи количества PHB се оценява около 4.4 USD/kg, т.е. далеч по-скъпо от производствената цена на полипропилена, която е близо до 1 USD/kg. Финансовите затруднения са несъмнено свързани с производствените разходи, както нагоре, така и надолу по веригата. Приблизително 40% и 50% от общите производствени разходи за PHB са присъщи съответно на суровините и системите за разделяне/пречистване. В техники за биоекстракция, генетичното инженерство е най-често използвано за въвеждане на микроорганизми и те са способни ефективно да екскретират PHB от натрупващи PHB клетки. Има няколко подхода, които са изследвани, включително бактериофагова система, медииран лизис и бактерии-хищници, които са по-добри от конвенционалните подходи за екстракция, които произвеждат екологично вредни разтворители, с по-високи разходи за разграждане. По този начин, поради неприемливите неекологични и неикономически свойства на конвенционалните методи за екстракция, се отделя повече внимание на системите за биоекстрация.
Биотехнология за ремедиация на замърсени места
Тази учебна единица е основно фокусирана върху технологиите, които позволяват изследването на микробиотата в почвата или сложните матрици. Основните технологии са изобразени по-долу (Фиг. 12).

Фигура 12: Техники за изучаване на сложността на микробиома
Култивационният подход е добре описан във видеото, което е произведено в рамките на Digit-Biotech. Този „класически метод“ предвижда идентифицирането на микроорганизми чрез изолиране на чисти култури, последвани от тестове, които анализират някои морфолого-физиологични и биохимични характеристики. Тези анализи често не са достатъчни за идентифициране на повечето видове микроорганизми и освен това се ограничават до култивируеми видове, които представляват много малък процент от всички видове, открити в природата. Тези тестове също имат сериозно ограничение че изискват значително време. Въпреки това, те имат голямо предимство при получаването чрез изолационния подход на целевите микроорганизми, които могат да бъдат използвани в биоредиационния подход.
През последните няколко десетилетия изследванията в областта на микробиологията са показали, че микробните общности играят функционална роля в контрола на екосистемите, които не се дължат на отделни видове, а за самите съобщества като „функционални единици“. Тази функционална дейност на микробните съобщества в много случаи е отговорна за важни процеси за хората, включително биоразграждането на оригиналните отпадъци в пречиствателните станции за отпадъчни води и депата, компостирането и като цяло всички процеси, при които се извършват химически трансформации на веществата. Денатурираща градиентна гел електрофореза (DGGE), PCR (или количествен PCR) и подхода на цял геном (високопроизводително секвениране и секвениране тип „пушка“) са основните технологии, използвани за изследване на микробните популации в околната среда.
DGGE: Това е техника на електрофоретично разделяне, използвана за разделяне и анализ на ДНК фрагменти, които се различават в нуклеотидната си последователност и по една базова двойка. В класическата електрофореза, проведена на агарозен или акриламиден гел, ДНК фрагментите се разделят на базата на молекулно тегло; Скоростта на движение намалява успоредно на увеличаването на дължината на фрагмента. Обратно, при DGGE фрагментите от ДНК с еднакво молекулно тегло се разделят съгласно типа денатурацията. Наличието на топлина или химически денатуриращи агенти позволява денатурирането на двете вериги на двойно-верижната ДНК (DSDNA) молекула. Температура и концентриране на денатуранта, към който се случва разделянето на двете вериги, силно зависят от последователността на самия фрагмент. По-специално, определящите фактори са: количеството водород, което са установено между допълнителните бази и вида взаимодействия, които са установени между базите в непосредствена близост на една и съща верига (взаимодействие с подреждане). Следователно, ДНК молекулата има области с характерни температури на топене или TM, определящи се от нуклеотидната последователност. ДНК фрагментите са почти идентични по молекулно тегло, но те също се различават по един нуклеотид, могат да се характеризират с ТМ, различни една от друга. Анализът чрез DGGE се провежда върху полиакриламиден гел, съдържащ денатуриращ градиент по такъв начин, че DSDNA да бъде обект, по време на увеличаване на условията на денатуриране с последващо разделяне при топилните домени. В горната част на гела, където има меки условия на денатуриране, топилните домени при по-ниски ТМ започват частично денатуриране, създавайки разклонени молекули с по-малка мобилност. Увеличаването на условията на денатуриране по полиакриламидния гел може да определи общото дисоциация на частично денатурираните фрагменти в едноверижна ДНК (SSDNA). Експериментално, пълното дисоциация на двете DSDNA нишките е възпрепятствано чрез въвеждане в края на всяка нишка, домейни, характеризиращи се с високо съдържание на G + C и High TM. G + C-богати региони са изкуствено създадени в единия край на DSDNA посредством включването на GC-скоба по време на амплификационни реакции. Включването на GC-скобата е възможно чрез използване на праймери, характеризиращи се с последователност от около 30-40 оC в 5 ‘края. Наличието на GC-скобата на една и съща последователност при крайника на всяка молекула причинява разликите между профилите на инсулт на анализираните фрагменти, които се определят главно чрез вариации в последователността на ниски топилни домейни. Тъй като TM се определя от нуклеотидната последователност, наличието на единична мутация е способно да генерира различен денатуриращ профил и следователно, различен електрофоретичен цикъл. Следователно, повтарянето на полиморфизмите в силно консервативни гени може да бъде анализирано от DGGE и може да предостави полезна информация за характеризиране на структурата на микробните общности. Всъщност, с денатурираща градиентна гел електрофореза, се получава електрофоретичен профил, образуван от серия от ленти, при който, като първо приближение, броят на лентите е пропорционален на броя на присъстващите видове и позицията на всяка лента е различна за всеки вид . Следователно, техниката на DGGE осигурява прост подход за получаване на профили на микробната общност, които могат да бъдат използвани за идентифициране на пространствени и времеви разлики в структурата на съобществото или за наблюдение на промените в структурата, които възникват в отговор на нарушения на околната среда.
PCR в реално време: Това е техника, която позволява да се амплифицира и в същото време да се определи количествено целевата ДНК последователност. Тя включва използването на флуоресцентни багрила, като например sybr зелено, което се интеркалира в малката примка на двойната спирала ДНК, или сонди със специфични последователности, състоящи се от олигонуклеотиди, маркирани с флуоресцентни багрила. Излъчената флуоресценция се измерва постоянно и осигурява информация в реално време за количеството произведен ампликон. От реакцията на амплификация се получава графика със сигмоидална крива; Тя започва възможно най-скоро при възможно по-голямо количество от началната ДНК и продължава да нараства с експоненциална тенденция, докато достигне максимална стойност (плато), в която реакцията ще се забави поради изчерпването на субстратите.
При изучаването на PCR графиката в реално време се определят три параметъра:
– флуоресцентна базова линия или базова линия;
– праговата линия, успоредна на основната линия;
– праговият цикъл или КТ, специфичен за всяка проба, идентифицира стойността на цикъла на PCR, в който кривата на експоненциалната фаза пресича праговата линия.
Повечето PCR инструменти в реално време са програмирани да четат дължини на вълните на SYBR зеления емисионен и възбуждащ спектър (съответно 495 nm и 537 nm). Тази боя е много чувствителна към светлина, тя се свързва само с двойно-верижна ДНК и следователно само до ново синтезирания ампликон. Пробите се определят количествено въз основа на калибровъчни криви, получени чрез използването на известни количества копия от 16 S rDNA гена. Сравнението между сигнала, излъчван от неизвестната проба с флуоресциращите стойности, използвани за конструирането на калибровъчната крива, позволява количествено определяне на специфични микробни видове. В допълнение към количественото измерване на целевите бактерии, интеркалаторите като SYBR зелени позволяват да се разграничат ампликоните с различна дължина и да се открият неспецифични амплификации, които могат да присъстват
Секвениране от ново поколение: Особеността на тази технология, въведена през 2006 г., се състои не само в способността да се посреща един ДНК фрагмент в даден момент, като се разширява този процес към милиони фрагменти едновременно, но също така и в способността за последователност на ДНК фрагменти в и двете посоки.
Първата стъпка включва едноверижни ДНК фрагменти в краищата на веригата наречени „индекс“, да се заредят върху поток от клетки, където те са прихванати на повърхността, съдържаща „олигонуклеотиди, все още комплементарни на индексите, върху които те са имобилизирани за подготовката на библиотеките. Хибридизацията между последните и ДНК фрагментите се появява чрез процеси на нагряване и охлаждане, последвано от инкубиране със специфични реагенти и изотермална полимераза. Чрез „мостова“ амплификация всеки фрагмент се усилва ясно от останалите, създавайки клъстер от клонове. Когато поколението на клъстера е завършено, генерираните модели, след подходяща денатурация, са готови за действително секвениране.
Illumina използва технология, базирана на верига, която завършва с флуоресцентни нуклеотиди с ОН при 3′ края; това гарантира, че се включена по една база за цикъл. Следва стъпка за снемане на изображения, за да се идентифицира нуклеотидът, включен във всеки клъстер и химическа стъпка за отстраняване на флуоресцентната група и терминалната OH група, за да се позволи включването на друга база в следващия цикъл.
В края на секвенирането, което отнема около 4 дни, последователността на всеки клъстер се подлага на процеси на подбор (подрязване), за да се елиминират ниско-качествените продукти. По време на анализа на данните фрагментите с различни дължини се подравняват и наслагат, като по този начин е възможно да се идентифицира последователността на изходната верига. В една стандартна процедура се анализират най-малко 40-50 милиона последователности.
Секвенирането тип пушка. Секвенирането тип пушка е последователно секвениране на всички геноми, присъстващи в сложна матрица, като например почвена проба. Следователно, секвенирането тип пушка е най-ефективният начин за секвениране на голяма част от ДНК. За това началната ДНК се разбива случайно на много по-малки парчета, нещо като обстрелване, като всяко от тези парчета след това се секвенира индивидуално. Получената последователност, генерирана от различните части, след това се анализира от компютърна програма, търсейки участъци от последователността от различните цикли, които са идентични един с друг. Когато се идентифицират идентични региони, те се припокриват помежду си, позволявайки двете последователности да се слепят заедно. Този компютърен процес се повтаря отново и отново, докато в крайна сметка не даде пълната последователност на началната част на ДНК. Първоначалното произволно фрагментиране и четене на ДНК даде на този подход името „секвениране тип пушка“.
Микробни технологии за здравето на пчелите
Множество биотични и абиотични видове стрес, като масовото използване на пестициди в селското стопанство и изменението на климата, компрометират оцеляването на опрашващите насекоми, с потенциално вредни последици както за агроекосистемите, така и за природните системи. Всъщност, пчелите са отговорни за опрашването на 84% от културните растителни видове, 35% от които са от световно значение и на 78% от дивите. Достатъчно е да се каже, че само 70% от семенните култури (като моркови, лук, чесън и т.н.) са строго зависими от опрашването от насекоми, както и 80% от 264-те видове култури, представляващи интерес в Европа. От това следва, че дейността на опрашващите насекоми, включително пчелите, играе съществена икономическа роля, чиято парична оценка е около 15 милиарда евро годишно само в Европа, докато в световен мащаб оценката нараства до 153 милиарда евро годишно.
В допълнение към огромната стойност за поддържане на биологичното разнообразие и баланс, присъстващи в различните екосистеми, пчелите доставят мед, пчелен восък, прополис, цветен прашец и пчелно млечице: в Европа данните, събрани през 2010 г., показват производство от около 220 000 тона мед с цени от 1,50 до 40 евро/кг в зависимост от района на произход. В Австралия например, производството на мед и пчелен восък годишно се движи около търговска стойност от 90 милиона долара, подчертавайки отново значението, което пчеларският сектор играе в панорамата на световната икономика. Пчелните семейства намаляват бързо от 6 милиона през 1940-те година на ХХ век до около 2,6 милиона днес. Наблюдава се висока годишна загуба на пчелни семейства, която се превръща в норма за пчеларите. Здравето на червата играе важна роля за вродения имунен отговор на гостоприемника и адаптивността към множеството стресови фактори, с които пчелите се сблъскват днес.
Маточниците, засегнати от феномена „Колапс на пчелните семейства“ (CCD) или „Синдром на обезлюдяване на кошера“, също показват значителни признаци на дисбаланс. Причините за този синдром все още не са ясни, но се смята, че те могат да се дължат на промени във факторите на околната среда, недохранване, наличие на патогени и масовата употреба на инсектициди. Симптоматологията вижда наличието на маточници, които изоставят ларвите си въпреки наличието на кралица, и липса на апетит към запасите от цветен прашец и нектар, които не се консумират веднага (Фиг. 13).

Фигура. 13. Общ изглед на Колапс на пчелните семейства
Една от възможните причини за това отмиране може да бъде свързана с дисбиоза на чревната микробиота, като промяна по отношение на микробното количество и състав. С този термин определяме явление, което влияе отрицателно върху полезните функции на микробиотата и което е свързано със специфични метаболитни дисбаланси. Всъщност, тези недостатъци биха могли да създадат сериозни проблеми в развитието на младите възрастни, като повлияят на способността им да развиват гени на резистентност, включително тези за синтеза на вителогенин, и чрез инхибиране на функциите на имунната система, като се имат предвид доказателствата, че същата микробиота насърчава неговата ефективност (Фиг. 14).

Фигура 14. Последици от промяната в състава на чревните микроби при пчелите
Преди няколко години се опитахме да разберем кои фактори могат да дестабилизират микробиотата, стигайки до заключението, че дисбиозата се причинява както от биотични, така и от абиотични фактори. Като се има предвид биотичния стрес, беше установено, че диетата, наличието на специфични патогени и нарушения (например, CCD) и неблагоприятните условия на околната среда играят фундаментална роля. Липсата на хранителни вещества има разрушително въздействие върху нормалното развитие на чревната микрофлора, последствие от което е повишаване на смъртността на пчелите, както и повишаване на податливостта към болести и патогени. Освен това, аномалните температури предизвикват състояние на стрес у гостоприемниците, рефлектиращо в драматични последици върху симбионтите.
Като се имат предвид абиотичните стресови фактори, щетите се дължат почти изцяло на използването на инсектициди, фунгициди, акарициди и антибиотици. Всъщност, по време на фуражните операции пчелите рискуват да погълнат непряко и да срещнат активните съставки, както върху основните третирани култури, така и върху съседните, подложени на дрейф. Това може да причини сериозни проблеми и дисбаланс в метаболизма и имунната защита: съществува възможност излагането на определени вещества да попречи на способността на пчелите да регулират своята микробна чревна популация.
Поради тези причини, една от най-иновативните бъдещи перспективи има за цел да разбере задълбочената връзка между микроорганизмите и пчелите, за да подобри драматичния им живот и условия.
Дисбиоза на червата: пример
Предвид нарастващия интерес, който общественото мнение проявява към този продукт, първият обективен анализ пада върху ефекта на глифозат (N-фосфонометил-глицин). Това е неселективен системен хербицид след поникване, т.е. тотален хербицид. Механизмът му на действие прекъсва метаболитния път, отговорен за синтезата на фенилаланин, тирозин и триптофан, инхибирайки синтезата на 3-фосфошикимат-1-карбоксивинилтрансфераза (EPSP синтаза). Този хербицид винаги се е смятал за един от най-малко токсичните продукти за животните, тъй като те не притежават този метаболитен път. Въпреки това е доказано, че може да засегне нецелеви организми – проявява силно токсични ефекти върху земните червеи, микроводораслите, водните бактерии, ризосферата и ендофитите. Въздействайки върху бактериите, трябва да се подчертае, че ефектите са открити и при чревни микроорганизми и симбионти по фауната в съседство със земеделски площи, включително пчели.
По-конкретно, Motta et al. (2018) провеждат проучване, насочено към характеризиране на микробиотата на пчелите, изложени на глифозат, като заключава, че абсолютното изобилие от S. alvi, G. apicola, Lactobacillus sp. и Bifidobacterium sp. (Фиг. 15) е претърпяло значително намаляване.

Фигура 15. Анализ на чревната микробиота на пчелите
Продуктът компрометира бактериалната флора, като спира растежа й, без обаче да я убива директно; следователно предполага се, че ефектът е върху клетъчното делене през първите дни на колонизация. Пчелите, които срещат хербицида на полето, всъщност пренесат активната съставка в кошера, която, тъй като е много стабилна и неразтворима във вода, би могла да остане на повърхностите дълго време. По същия начин, дори на полето, постоянството означава, че замърсяването може да продължи дълго време. Следователно, вътре в кошера дифузията чрез трофалаксия и контакт с други пчели означава, че продуктът достига до младите ларви, хранени от възрастни, непоправимо променяйки развитието на полезните видове симбионти.
Как се придобива микробиотата?

Фигура 16. Жизненият цикъл на пчелите
Естествените бактерии, попадащи в пчелите от цветята, докато събират нектар и цветен прашец, се намират предимно в средната и задната част на медоносните пчели. Чревните бактерии, естествено открити в пчелите, са динамични. По време на развитието на ларвите (Фиг. 16) бактериалната популация се колебае. Ларвите получават някои бактерии от пчелите кърмачки, които ги хранят. По време на стадия какавида, лигавицата на червата се отделя, а червата на новопоявилата се възрастна пчела са стерилни. Червата бързо се колонизират повторно с характерна микробиота. Как става това? Основните пътища са орална трофалаксия, взаимодействие с кошерен материал и фекално-орално предаване. По-специално, характерната микробиота на възрастните пчели започва да се развива около четири дни след появата им.
Въпреки че факторите, позволяващи еволюцията на микробиотата за всяко живо същество, все още са неизвестни, доказано е, че социалните пчели притежават отличителна микрофлора в зависимост от семейството, към което принадлежат. Например, анализирайки микробиотата на различни родове еусоциални карбикулатни Apoidea като Bombus spp., Megachile spp. и Apis spp., основните бактериални родове са повтарящи се (Snodgrassella spp., Gilliamella spp., Bifidobacterium spp. и Lactobacillus spp.), но видовете варират по отношение на вида насекоми. Оттук произтича хипотезата, според която микробиотата е резултат от динамична съвместна еволюция на микроорганизми и гостоприемници, в зависимост от околната среда и от генотипните вариации, на които видът е бил подложен през вековете, чието богатство също е свързано с размера на отделни пчели и цели семейства. Всъщност, установяването на специфична за вида микрофлора е резултат от дълга селекция, при която са установени оптималните полезни съотношения както за микроорганизмите, така и за гостоприемниците.
Кои и къде са те?
Изчислено е, че в червата на възрастни пчели работнички има около 1 милиард бактериални клетки, 95% от които са разположени, по-специално в задната част на червата (Фиг. 17). Тук се отбелязва специфична диференциация между илеума и ректума; като в първия има три вида протеобактерии G. apicola, F. perrara и S. alvi, които образуват плътен биофилм в съответствие с малпигиевите тръби и който продължава по дължината на илеума. В ректума обаче, преобладава гъста бактериална общност, образувана от три класа грам-положителни бактерии, Firmicutes (Firm-4, Firm-5) и Bifidobacteria. Що се отнася до средното черво, установено е, че има главно Lactobacillus spp. и Acetobacteraceae, тоест онези таксони, които се срещат и в цветния прашец, нектар и по-общо в кошера. Следователно, може да се каже, че предварително адаптирана микробиота не съществува в средната част на червата и че тя варира в зависимост от околната среда и хранителните навици на индивида. В количествено отношение тук има много по-малко изобилна флора, отколкото в ректума. Средното черво също съдържа малко бактерии и тези присъствия са по-концентрирани в прокамерната област, съседна на задната част на червата.

Фигура 17. Основната микробиота на пчелите
Какви са функциите на чревната микробиота?
През последните няколко години научната общност започна да проявява все по-голям интерес към ролята, която микробиотата играе за благосъстоянието на пчелите (Фиг. 18). Многобройни проучвания и изследвания показват, че взаимодействията с гостоприемника имат поддържащи ефекти както на метаболитно и хранително ниво, така и по отношение на имунния отговор към патогени. Що се отнася до хранителната подкрепа, балансираната бактериална флора е необходима за правилното усвояване на хранителните вещества, тъй като благодарение на ензимната си активност, тя участва в разграждането на сложните захари. Освен че са отговорни за наличието на целулази, хемицелулази и лигнинолитични ензими в червата, полезни за процеса на храносмилане на поленови зърна, богатството на видовете е такова, че позволява съвместното съществуване на различни пътища на катализа на захарта (особено за Gammaproteobacteria, Firmicutes and Bifidobacteriaceae). Всъщност, изчислено е, че 91% от протеиновите транскрипти, свързани с храносмилането на растителни макромолекули и с ферментационните явления на мономерни субединици, се произвеждат от бактерии. Друг конкретен пример се отнася до пектин-лиази, способни да разграждат пектините, присъстващи в клетките на стената на поленовите зърна. Последното също е отличен показател за високата генетична вариабилност и адаптивност в рамките на един и същи вид микроорганизми. Всъщност се вижда, че само някои щамове на G. apicola ги притежават, докато други са напълно лишени от тях. Важността на по-големия храносмилателен капацитет и следователно, способността да се метаболизират хранителни вещества, които не могат да бъдат разрушени, е доказана в различни проучвания. Zheng et al. (2017), например, сравнявайки пчелите с нормална микробиота и други без чревна флора, подчертават значителни физиологични различия. В първите симбионтите повлияват положително размера на червата, теглото на индивидите, стойностите на вителогенин и инсулин и чувствителността към захари. След това тези открития предполагат, че микробиотата може да повлияе на апетита и растежа на тялото на пчелите чрез увеличаване на сигналите, свързани с наличието на инсулин.
В допълнение към хидролизата на сложни въглехидрати, чревните микроорганизми произвеждат полезни метаболитни субстрати, като витамин В и мастни киселини с къси вериги. Например, родовете Lactobacillus sp. и Bifidobacterium sp. участват в процесите на ферментация на цветен прашец и нектар, така че се считат за отговорни за витаминната стойност на меда. Феноменът на симбиоза с гостоприемника надхвърля хранителната и метаболитната подкрепа: микробиотата играе важна роля в поддържането на имунната система. Всъщност, на първо място, бактериите биха могли директно да стимулират производството на собствените защитни молекули на пчелата. След контакта между епителната повърхност и пептидогликана (основен компонент на клетъчната стена на грам-положителни бактерии), имунната система може да активира гените за производство на 6 антимикробни пептида като: абаецин, хименоптаецин, апидицин, дефензин-1 и дефензин -2. Следователно, производството на тези съединения се засилва от промените в самите микробни мембрани и може също да бъде предизвикано от излагане на някои патогенни и непатогенни микроорганизми. Например, Frischella perrara, симбионт, който колонизира илеума в задната част на червата, преди всичко стимулира производството на апидицин. Второ, микробиотата може да е пряко отговорна за производството на антимикробни съединения, което се потвърждава от многобройни изследвания. Saraiva et al. (2015), например, документира наличието на множество гени, участващи в биосинтезата на стрептомицин и на вторични метаболити, експресирани от симбионти и които могат да играят роля в поддържането на микробиотата.

Фигура 18. Функции на чревната микробиота на пчелите
Какво можем да направим?
Индивидуалният и общ опит показва, че при хора и животни, биотичният и абиотичният стрес биха могли да повлияят негативно на състава на чревната микробиота и следователно да предизвикат специфични промени в дейността на микроорганизмите на нивото на червата.
Трябва да се запитаме дали някакъв вид модулация на микробиотата, чрез прилагане на избрани щамове, може да възстанови това смущение, да намали смъртността на пчелите и/или да подобри здравето им.
Пробиотиците са „живи микроорганизми, които, когато се прилагат в адекватни количества, носят полза за здравето на гостоприемника, с изключение на биотерапевтичните средства и полезни микроорганизми, които не се използват в храната“ (FAO / WHO, 2001). Следователно, тяхното прилагане не трябва да бъде свързано с отрицателни ефекти върху организмите и околната среда. Начинът на действие на тези микроорганизми може да бъде обобщен в следните функции:
- ЗАЩИТНА ФУНКЦИЯ: дислокация на патогени, конкуренция за хранителни вещества, конкуренция с рецептори и производство на антимикробни молекули (напр., бактериоцини, органични киселини …);
- СТРУКТУРНА ФУНКЦИЯ: бариерен ефект, биофилм върху стената на чревните власинки, развитие на имунната система;
- МЕТАБОЛИЧНА ФУНКЦИЯ: диференциация и пролиферация на чревни епителни клетки, катализа на канцерогенни вещества, присъстващи в храната, синтеза на витамини, ферментация на несмилаеми захари, абсорбция на йони и пестене на енергия.
Изглежда обаче, че основният механизъм на действие на пробиотиците е стимулирането на имунната система: след кохезия с чревната стена те са в състояние да стимулират поредица от каскадни сигнали, които активират синтезата на антимикробни пептиди. На практика, те са в състояние да изпълняват така описаните задачи, които микробиотата на пчелата естествено изпълнява, което се оказва хипотетично оптимално средство за опазването и оптимизирането й, както и за подобряване на перспективите за живота на пчелата.
Както при храненето на хора и животни, основните бактерии, считани за способни да постигнат тези ползи, са Lactobacillus spp., Bifidobacterium spp., Bacillus spp.
В заключение, използването на пробиотиците наскоро започна да се оценява и в самия кошер. Всъщност, въпреки че пчелите предпочитат да консумират пресен прашец, при определени условия, като сезонност, те трябва да се снабдяват със съхранените запаси. Влажната среда (50-60% относителна влажност), която се създава след събирането на цветен прашец, увеличава риска от неконтролиран бактериален и преди всичко растеж на гъбички. Има ясна необходимост да се защитят запасите вътре в кошера, за да се избегнат инфекции, които биха могли да доведат до фатални резултати, като калцирани ларви, причинени от Ascosphaera apis, или чревни инфекции, дължащи се на Nosema spp.

Тест: РО7 Ниво за напреднали
Библиография
- EFSA (2009). Bee mortality and bee surveillance in Europe.CFP/EFSA/AMU/2008/02
- Motta EVS, Raymann K, Moran NA. 2018. Glyphosate perturbs the gut microbiota of honeybees. Proc Natl Acad Sci USA, pp. 1-6
- Zheng H, Powell JE, Steele MI, Dietrich C, Moran NA. 2017. Honeybee gut microbiota promotes host weight gain via bacterial metabolism and hormonal signaling. Proc Natl Acad Sci USA, 114: 4775-4780
- Saraiva MA, Zemolin APP, Franco JL, Boldo JT, et al. 2015. Relationship between honeybee nutrition and their microbial communities. Antoine Van Leeuwenhoek, 107: 921-933
- FAO/WHO (2001). Health and nutritional properties of probiotics in food including powder milk with live lactic acid bacteria. Food and Agriculture Organization of the United States, World Health Organization
- Kainthola J, Kalamdhad AS, Goud VV. 2019. A review on enhanced biogas production from anaerobic digestion of lignocellulosic biomass by different enhancement techniques. Process Biochemistry, 84: 81-90
- Shamurad B, Sallis P, Petropoulos E, Tabraiz S, Ospina C, Leary P, et al. 2020. Stable biogas production from single-stage anaerobic digestion of food waste. Applied Energy, 263: 114609
- Kumar M, Dutta S, You S, Luo G, Zhang S, Show PL, et al. 2021. A critical review on biochar for enhancing biogas production from anaerobic digestion of food waste and sludge. Journal of Cleaner Production, 127143
- Azhar, S. H. M., Abdulla, R., Jambo, S. A., Marbawi, H., Gansau, J. A., Faik, A. A. M., & Rodrigues, K. F. (2017). Yeasts in sustainable bioethanol production: A review. Biochemistry and Biophysics Reports, 10, 52-61.
- Galbe M, Zacchi G. 2007. Pretreatment of lignocellulosic materials for efficient bioethanol production. Biofuels, 41-65.
- Kim S, Dale BE. 2004. Global potential bioethanol production from wasted crops and crop residues. Biomass and bioenergy, 26(4): 361-375.
- Vilpoux O, Averous L. 2004. Starch-based plastics. Technology, use and potentialities of Latin American starchy tubers, 521-553.
- Sin LT. 2012. Polylactic acid: PLA biopolymer technology and applications. William Andrew.
- Koh JJ, Zhang X, He C. 2018. Fully biodegradable Poly (lactic acid)/Starch blends: A review of toughening strategies. International journal of biological macromolecules, 109: 99-113.
- Poltronieri P, Kumar P. 2017. Polyhydroxyalkanoates (PHAs) in industrial applications. Handbook of Ecomaterials. Cham: Springer International Publishing, 1-30.
- Yu CJ, Wan YJ, Yowanto H, et al. 2001. Electronic detection of single-base mismatches in DNA with ferrocene-modified probes. J Am Chem Soc, 123:11155–61.
- Yu X, Kim SN, Papadimitrakopoulos F, et al. 2005. Protein immunosen- sor using single-wall carbon nanotube forests with electrochemical detection of enzyme labels. Mol Biosyst, 1:70–8.